
À la fin de cette leçon, tu sauras :
- Construire une argumentation complète démontrant l’existence du brassage intrachromosomique à partir d’une expérience de test cross sur gènes liés
- Choisir le format adapté : version courte (½ page, révision) ou version longue (1 page, type bac)
- Mobiliser les étapes méthodologiques attendues : souches pures → F1 → test cross → prédiction → observation → interprétation par crossing-over
- Visualiser le mécanisme du brassage intrachromosomique sur un schéma bilan
Cette leçon propose deux versions de la même argumentation. La version courte d’abord (synthèse exigeante de révision). La version longue ensuite (démonstration rédigée à entraîner pour le bac). Lis les deux, et choisis celle qui correspond à ton besoin du moment.
Version courte (½ page) — Synthèse de révision
Pour démontrer l’existence du brassage intrachromosomique, on croise deux souches pures de drosophiles différant pour deux gènes liés (portés par le même chromosome) : une souche sauvage (b⁺ vg⁺ / b⁺ vg⁺) et une souche double mutante (b vg / b vg). La F1 obtenue est uniformément (b⁺ vg⁺ / b vg), 100 % double hétérozygote de phénotype [b⁺, vg⁺].
Sous l’hypothèse « pas de crossing-over », F1 ne devrait produire que 2 gamètes parentaux (b⁺ vg⁺) et (b vg), à 50 % chacun. Le test cross avec un double homozygote récessif devrait donc donner en F2 seulement 2 phénotypes parentaux à 50 % chacun.
Or l’observation expérimentale révèle 4 phénotypes en F2 : 2 parentaux nettement majoritaires (~80-95 % au total) et 2 recombinés minoritaires (~5-20 % au total). L’existence des phénotypes recombinés prouve que F1 produit aussi des gamètes recombinés (b⁺ vg) et (b vg⁺), porteurs de combinaisons d’allèles absentes des chromosomes parentaux.
L’observation directe au microscope des bivalents en prophase I, déjà décrite par Janssens en 1909, met en évidence des chiasmas — sites visibles d’échange entre chromatides homologues. Morgan (1911) démontre génétiquement que ces chiasmas correspondent à des crossing-over et que la fréquence de recombinaison est proportionnelle à la distance entre les gènes.
Conclusion : le brassage intrachromosomique est le mécanisme par lequel des fragments de chromatides homologues sont échangés en prophase I (sous-phase pachytène) lors d’un crossing-over. Il génère des chromatides recombinées et donc des gamètes recombinés. C’est un événement rare à une position donnée — d’où la minorité de recombinés observés — et sa fréquence permet de cartographier les gènes (centiMorgan).
Version longue (1 page) — Argumentation rédigée type bac
Introduction et problématique
Dans le Topic 3, l’étude de deux gènes indépendants (eb et vg) chez la drosophile a permis de mettre en évidence le brassage interchromosomique par la production de 4 phénotypes équiprobables en F2 d’un test cross. Mais que se passe-t-il si l’on étudie deux gènes liés, c’est-à-dire portés par le même chromosome ? Un nouveau mécanisme de brassage est-il à l’œuvre ? Pour répondre, on conçoit une expérience analogue au Topic 3, mais avec deux gènes liés : b (black, couleur du corps) et vg (vestigial, forme des ailes), tous deux portés par le chromosome 2 de la drosophile.
Mise en place du croisement et obtention de F1
On part de deux souches pures : une souche sauvage (b⁺ vg⁺ / b⁺ vg⁺), de phénotype [b⁺, vg⁺] (corps jaune-gris, ailes longues), et une souche double mutante (b vg / b vg), de phénotype [b, vg] (corps noir, ailes vestigiales). Chaque souche pure ne produit qu’un seul type de gamète : (b⁺ vg⁺) pour la souche 1, (b vg) pour la souche 2. La fécondation produit une F1 uniforme de génotype (b⁺ vg⁺ / b vg) et de phénotype [b⁺, vg⁺]. L’uniformité phénotypique de la F1 valide à elle seule la pureté des souches parentales.
Prédiction théorique sans crossing-over
Si l’on suppose que les chromosomes restent intacts pendant la méiose (pas de crossing-over), F1 ne peut produire que les deux gamètes parentaux (b⁺ vg⁺) et (b vg), chacun à 50 %. Le test cross avec un double homozygote récessif (b vg / b vg) — qui ne produit qu’un seul gamète (b vg) — donnerait donc en F2 seulement 2 phénotypes parentaux à 50 % chacun : [b⁺, vg⁺] et [b, vg]. Aucun phénotype recombiné ne serait attendu.
Observation expérimentale
Le comptage rigoureux des drosophiles F2 (anesthésie au CO₂, tri sur plaquette, mise en commun entre binômes pour augmenter la taille de l’échantillon) révèle un résultat inattendu : 4 phénotypes sont présents en F2, pas 2. Les phénotypes parentaux [b⁺, vg⁺] et [b, vg] sont fortement majoritaires (typiquement ~80-95 % des effectifs au total), mais on observe également deux phénotypes recombinés minoritaires, [b⁺, vg] et [b, vg⁺] (~5-20 % au total). Cette observation démontre que F1 produit non seulement les gamètes parentaux attendus, mais aussi des gamètes recombinés (b⁺ vg) et (b vg⁺), porteurs de combinaisons d’allèles absentes des chromosomes parentaux d’origine.
Le crossing-over comme mécanisme explicatif
L’existence des gamètes recombinés ne peut s’expliquer que par un échange physique de portions entre chromatides homologues au cours de la méiose. Or cet échange est directement observable au microscope : dès 1909, le cytologiste belge Frans Janssens avait décrit des chiasmas sur les bivalents en prophase I, sites visibles d’échange entre chromatides homologues. Deux ans plus tard, en 1911, Thomas Hunt Morgan démontre génétiquement que ces chiasmas correspondent à des crossing-over, mécanisme moléculaire d’échange réciproque de fragments entre chromatides homologues, et que leur fréquence est proportionnelle à la distance qui sépare les gènes étudiés. Morgan recevra le prix Nobel en 1933 pour ces travaux fondateurs.
Pourquoi les recombinés sont-ils minoritaires ?
Le crossing-over à une position donnée du chromosome est un événement rare. Toutes les méioses ne donnent pas lieu à un crossing-over entre b et vg : seules une minorité y aboutissent. Les autres méioses ne produisent que des gamètes parentaux. Cette rareté explique directement la minorité des phénotypes recombinés observés. De plus, la fréquence de recombinaison est proportionnelle à la distance entre les deux gènes : plus les gènes sont éloignés, plus la probabilité d’un crossing-over entre eux est élevée. Cette relation fonde la cartographie génétique exprimée en centiMorgans (1 cM = 1 % de descendants recombinés).
Conclusion
Nous avons mis en évidence le brassage intrachromosomique : mécanisme par lequel des fragments de chromatides homologues sont échangés en prophase I de la méiose (sous-phase pachytène), par le biais d’un crossing-over. Ce brassage diversifie les gamètes à l’intérieur même des chromosomes, en redistribuant les allèles présents sur les chromosomes parentaux. Combiné au brassage interchromosomique (Topic 3), il génère une diversité génétique des gamètes pratiquement infinie. Chez l’humain, à l’échelle d’un seul individu, ces deux mécanismes combinés à la fécondation aléatoire (Topic 5) garantissent que chaque enfant est, sauf jumeaux vrais, génétiquement unique.
Schéma bilan
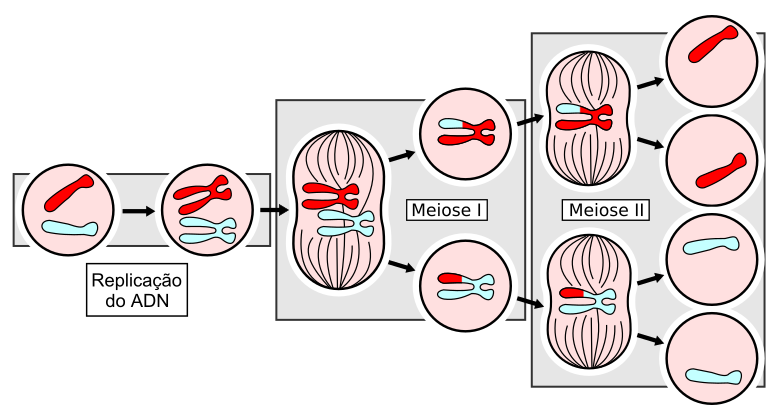
Ce qu’il faut retenir des deux versions
- Démarche en 6 temps : souches pures → F1 → test cross → prédiction sans CO → observation (4 phénotypes) → interprétation par le crossing-over
- L’existence des phénotypes recombinés, même minoritaires, suffit à démontrer l’existence du brassage intrachromosomique
- Crossing-over : observation cytologique (Janssens, 1909) + démonstration génétique (Morgan, 1911) — événement rare à une position donnée
- Fréquence de recombinaison ∝ distance entre gènes → cartographie génétique en centiMorgans
- Combiné aux brassages interchromosomique (Topic 3), il génère une diversité presque infinie des gamètes
Sources scientifiques :
- Janssens, F. A. (1909). La théorie de la chiasmatypie. La Cellule 25 : 387-411.
- Morgan, T. H. (1911). Random segregation versus coupling in Mendelian inheritance. Science 34 : 384.
- Programme officiel BO Terminale spé SVT, sous-thème 1A — Licence Etalab.
🤖 Synthèse rédigée avec assistance IA à partir des cours universitaires et de sources académiques de référence.
ℹ️ Pour assurer un suivi personnalisé, les quiz ne sont accessibles qu'en étant connecté :
- en cliquant sur suivant vous serez donc redirigé vers une page de connexion,
- pour poursuivre sans vous connecter, merci de cliquer directement sur la leçon dans le menu.