
1. Qu’est-ce qu’un clone cellulaire ?
Lors d’une mitose, une cellule-mère donne naissance à deux cellules-filles strictement identiques entre elles et identiques à la cellule-mère. La phase S de l’interphase, qui précède la mitose, a en effet répliqué l’ADN à l’identique : les deux chromatides sœurs d’un chromosome double sont rigoureusement les mêmes, et la mitose les répartit équitablement entre les cellules-filles.
Clone cellulaire : ensemble de cellules issues, par mitoses successives, d’une même cellule initiale, et possédant donc en théorie exactement la même information génétique.
Une population clonale de levures en boîte de Petri illustre simplement cette notion : toutes les colonies sont issues d’une seule levure initiale, et toutes les cellules d’une colonie sont normalement identiques génétiquement.
2. Toutes les cellules d’un organisme sont des clones
Le même raisonnement s’applique à un organisme pluricellulaire. Tous les organismes pluricellulaires se développent à partir d’une cellule-œuf (zygote) issue de la fécondation. Cette cellule subit une succession de mitoses qui produit l’ensemble des cellules de l’organisme adulte — environ 1014 cellules chez l’humain.
À ce titre, l’organisme tout entier peut être considéré comme un grand clone de la cellule-œuf : toutes ses cellules portent en théorie la même information génétique, héritée du zygote.
Cette identité génétique théorique entre les cellules d’un organisme est la base de toute la génétique : c’est elle qui permet, par exemple, qu’un test ADN réalisé sur un cheveu, une cellule de joue ou une cellule sanguine donne le même résultat.
3. Pourquoi les clones ne sont pas parfaitement identiques
Les analyses génétiques modernes (séquençage de cellules individuelles) montrent cependant que les cellules d’un même clone, bien que très proches génétiquement, ne sont pas strictement identiques.
L’origine de ces différences se situe lors de la réplication de l’ADN. L’ADN polymérase, malgré son extraordinaire fidélité et ses systèmes de correction (proof-reading), commet des erreurs aléatoires : on estime le taux d’erreur résiduel à environ 1 nucléotide pour 109 nucléotides copiés.
Ce taux semble dérisoire. Mais à l’échelle du génome humain (6,4 × 10⁹ paires de bases) et des innombrables divisions cellulaires d’une vie (~1016 à 1017), les erreurs s’accumulent inéluctablement.
4. Du sous-clone à la mosaïque génétique
Toute mutation qui apparaît dans une cellule est ensuite transmise par mitose à l’ensemble des cellules-filles qui en sont issues. Ces cellules, qui diffèrent légèrement génétiquement des autres cellules du clone d’origine, forment un sous-clone.
Sous-clone : ensemble de cellules portant une mutation commune, héritée d’une cellule ancestrale dans laquelle cette mutation est apparue. Tous les descendants par mitose de cette cellule mutée constituent le sous-clone.
La majorité des mutations sont silencieuses (sans effet sur le phénotype) ou réparées au cycle suivant. Mais l’accumulation de ces variations fait que, contrairement à ce qu’enseigne le modèle théorique, chaque individu est en réalité une mosaïque de sous-clones. Cette idée centrale sera développée à la Lesson 1.4.
5. Quatre arguments scientifiques pour étayer ces notions
5.1 L’expérience de Luria et Delbrück (1943) — démontrer l’apparition spontanée des mutations
Avant 1943, deux hypothèses s’opposaient sur l’origine des mutations dans une population de bactéries :
- Hypothèse adaptative : les mutations apparaîtraient en réponse à une pression de sélection (ex. la présence d’un virus), comme une adaptation dirigée.
- Hypothèse spontanée : les mutations apparaîtraient au hasard, indépendamment de toute pression de sélection.
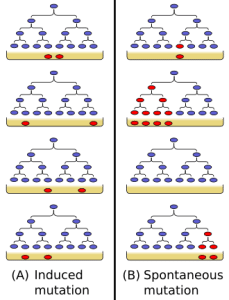
Figure 1. Test de fluctuation de Luria et Delbrück (1943). Quatre cultures bactériennes indépendantes sont mises à pousser, puis exposées à un bactériophage. Colonne de gauche — hypothèse adaptative : les mutations apparaîtraient au moment du contact avec le phage, donc en proportions similaires d’un tube à l’autre. Colonne de droite — hypothèse spontanée : les mutations apparaissent aléatoirement pendant la croissance, à des moments différents selon les tubes. Le nombre de bactéries résistantes (cercles rouges) doit alors fluctuer fortement d’un tube à l’autre. C’est ce qui est observé expérimentalement, validant l’hypothèse spontanée.
Schéma de Madeleine Price Ball (Madprime), placé dans le domaine public (CC0 1.0), via Wikimedia Commons.
Salvador Luria et Max Delbrück ont conçu en 1943 une expérience décisive — le « test de fluctuation ». Ils ont mis en culture de nombreuses populations indépendantes d’Escherichia coli, puis les ont exposées à un bactériophage (virus létal pour les bactéries). En comptant les bactéries résistantes survivantes, ils ont observé que le nombre de résistantes fluctuait énormément d’une culture à l’autre — un résultat incompatible avec l’hypothèse adaptative, mais parfaitement prédit par l’hypothèse spontanée.
Conclusion : les mutations apparaissent spontanément et au hasard au cours des divisions cellulaires, indépendamment de toute pression de sélection. Cette expérience a valu à Luria et Delbrück (avec Hershey) le prix Nobel de physiologie ou médecine en 1969.
C’est cette expérience qui fonde, à l’échelle moléculaire, notre compréhension de l’origine des sous-clones : ils naissent par hasard, pas par adaptation.
5.2 Le calcul démonstratif
Mobilise les ordres de grandeur du chapitre :
- Génome humain : 6,4 × 10⁹ paires de bases
- Taux d’erreur résiduel : 1 / 109 nucléotide
- Nombre estimé de mitoses au cours d’une vie humaine : ~1016 à 1017
À chaque réplication, statistiquement, environ 6 nouvelles mutations apparaissent par cellule (6,4 × 109 × 1 / 109 ≈ 6). Sur une vie entière de divisions, le nombre cumulé de mutations dans le pool cellulaire devient considérable. Cet ordre de grandeur, simple à calculer, est l’argument le plus quantitatif pour démontrer l’inévitabilité du mosaïcisme.
5.3 Dolly : le clonage et ses limites
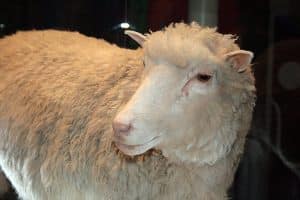 Figure 2. Dolly, premier mammifère cloné à partir d’une cellule somatique adulte (Roslin Institute, Édimbourg, 1996). Photographie de Dolly empaillée au National Museum of Scotland, où elle est exposée depuis sa mort en 2003. Le clonage de Dolly a illustré à la fois la possibilité technique du clonage et ses limites biologiques : Dolly a montré des signes de vieillissement précoce (raccourcissement des télomères hérités d’une cellule adulte de 6 ans).
Photo de Toni Barros,
sous licence CC BY-SA 2.0,
via Wikimedia Commons.
Dolly la brebis, née en 1996 et présentée au public en 1997, est le premier mammifère cloné par transfert de noyau de cellule somatique (équipe d’Ian Wilmut, Roslin Institute, Édimbourg). Une cellule mammaire d’une brebis adulte a fourni le noyau (donc le génome), inséré dans un ovocyte énucléé puis implanté.
Mais Dolly a montré des signes de vieillissement précoce : son ADN, hérité d’une cellule somatique déjà âgée de 6 ans, portait des télomères raccourcis et de probables mutations somatiques accumulées. Cela illustre concrètement que le « clonage parfait » d’un organisme adulte est en réalité limité par les altérations génétiques cumulées du donneur.
L’argument Dolly montre que même une cellule choisie pour faire un « clone parfait » porte déjà l’empreinte génétique de son histoire mitotique — preuve indirecte de la réalité du mosaïcisme somatique.
5.4 La PCR : un analogue moléculaire
La PCR (réaction de polymérisation en chaîne) est une technique de biologie moléculaire qui amplifie une séquence d’ADN par cycles successifs de réplication, en utilisant une polymérase thermostable, la Taq polymérase. Chaque cycle double la quantité d’ADN.
Or la Taq polymérase n’a pas de système de correction d’erreurs efficace. Son taux d’erreur est de l’ordre de 1 / 104 à 1 / 105 par nucléotide — soit 10 000 à 100 000 fois plus que l’ADN polymérase humaine. À chaque cycle, des erreurs aléatoires sont introduites dans certaines copies, et ces erreurs sont ensuite répliquées dans les cycles suivants.
Conséquence : après 30 cycles de PCR, une partie significative des molécules amplifiées portent au moins une mutation par rapport à la séquence originale. Le pool amplifié n’est donc pas un clone parfait de la matrice de départ — il contient des « sous-clones » de molécules variantes.
La PCR illustre à l’échelle moléculaire exactement le même phénomène que celui observé à l’échelle cellulaire : une population issue d’une matrice unique, par réplications successives avec un certain taux d’erreur, accumule inéluctablement des variations. C’est le même processus, deux échelles différentes — une analogie particulièrement parlante.
Ce qu’il faut retenir
- Un clone cellulaire est un ensemble de cellules issues, par mitoses successives, d’une même cellule initiale
- Un organisme pluricellulaire entier est, en théorie, un clone de sa cellule-œuf
- L’ADN polymérase commet ~1 erreur pour 109 nucléotides copiés. Multiplié par la taille du génome et le nombre de divisions, cela rend le mosaïcisme inévitable
- Une mutation apparue dans une cellule est transmise par mitose à toutes ses descendantes : c’est la définition d’un sous-clone
- Quatre arguments scientifiques étayent ces notions : Luria & Delbrück (mutations spontanées et aléatoires), calcul (~6 mutations / cellule / réplication), Dolly (limites du clonage), PCR (analogue moléculaire à la mosaïque cellulaire)
Sources scientifiques de cette leçon :
- Luria, S. E. & Delbrück, M. (1943). Mutations of bacteria from virus sensitivity to virus resistance. Genetics 28: 491-511.
- Wilmut, I. et al. (1997). Viable offspring derived from fetal and adult mammalian cells. Nature 385: 810-813.
- Eckert, K. A. & Kunkel, T. A. (1990). DNA polymerase fidelity and the polymerase chain reaction. PCR Methods Appl 1: 17-24.
- Programme officiel BO Terminale spé SVT, sous-thème 1A — Licence Etalab.
🤖 Synthèse rédigée avec assistance IA à partir des cours universitaires et de sources académiques de référence.
ℹ️ Pour assurer un suivi personnalisé, les quiz ne sont accessibles qu'en étant connecté :
- en cliquant sur suivant vous serez donc redirigé vers une page de connexion,
- pour poursuivre sans vous connecter, merci de cliquer directement sur la leçon dans le menu.