
Chapitre 2 — Électrophysiologie cellulaire · Topic 2 : Effet Donnan et potentiel de repos · Leçon 2.2
Toute cellule vivante au repos présente une différence de potentiel électrique entre son intérieur et son extérieur : le potentiel de repos. Sa valeur, toujours négative (de −30 à −90 mV selon le type cellulaire), résulte de la combinaison des gradients ioniques et des perméabilités relatives de la membrane. L’équation de Goldman formalise ce lien.
🎯 Objectifs pédagogiques
- Définir le potentiel de repos (Vm = Vint − Vext) et donner des valeurs typiques ;
- Exposer la théorie de Boyle et Conway et en identifier la limite ;
- Écrire et interpréter l’équation de Goldman (paramètres bNa, bK) ;
- Connaître les gradients ioniques au repos (Na⁺, K⁺, Cl⁻ intérieur/extérieur) ;
- Expliquer pourquoi le flux net de chaque ion est nul au repos.
🧭 Plan de la leçon
- Définition et valeurs du potentiel de repos
- Théorie de Boyle et Conway — imperméabilité au Na⁺
- Théorie de Hodgkin et Huxley — équation de Goldman
- Gradients ioniques au repos
- Bilan des flux au repos
1. Définition et valeurs du potentiel de repos
Le potentiel de membrane est défini par convention comme :
Vm = Vint − Vext
Au repos, Vm est toujours négatif — l’intérieur cellulaire est chargé négativement par rapport à l’extérieur. Les valeurs typiques à connaître pour le concours :
- Cellule myocardique : −90 mV
- Neurone : −70 mV
- Cellule musculaire lisse : −30 à −60 mV
Ces valeurs ne s’expliquent pas par un seul ion : plusieurs ions contribuent à ce potentiel, selon leurs concentrations intérieure/extérieure et la perméabilité relative de la membrane à chacun d’eux.
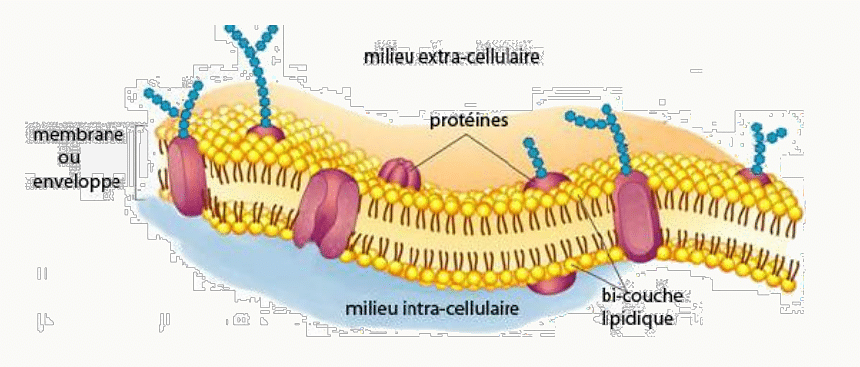
2. Théorie de Boyle et Conway — imperméabilité au Na⁺
Hypothèse de Boyle et Conway (1941) : la membrane au repos est imperméable au sodium. Si Na⁺ ne diffuse pas, seuls K⁺ et Cl⁻ contribuent au potentiel de membrane. Dans ce cas, Vm = VK⁺ = potentiel d’équilibre de K⁺ (équation de Nernst) ≈ −90 mV.
Limite : en réalité, la membrane n’est pas totalement imperméable à Na⁺. Des canaux sodiques passifs (canaux de fuite) permettent à Na⁺ d’entrer lentement dans la cellule au repos. La perméabilité à Na⁺ n’est pas nulle — elle est seulement bien inférieure à celle de K⁺. Le potentiel de repos réel est donc moins négatif que VK⁺.
3. Théorie de Hodgkin et Huxley — équation de Goldman
Pour tenir compte de la perméabilité partielle de la membrane à Na⁺, Hodgkin et Huxley (1952, Prix Nobel 1963) ont établi l’équation de Goldman (aussi appelée équation GHK — Goldman-Hodgkin-Katz) :
Vint − Vext = −(RT/F) · ln [(bNa·[Na⁺]int + bK·[K⁺]int) / (bNa·[Na⁺]ext + bK·[K⁺]ext)]
Où b = coefficient de diffusion de l’ion dans la membrane (proportionnel à la perméabilité membranaire pour cet ion). Au repos, bNa/bK ≈ 1/75 à 1/100, ce qui traduit la bien plus faible perméabilité de la membrane aux ions sodium.
L’équation de Goldman est une généralisation de celle de Nernst pour plusieurs ions. Deux cas limites :
- Si bNa → 0 (membrane imperméable à Na⁺) : l’équation de Goldman se réduit à l’équation de Nernst pour K⁺ → Vm → VK⁺ ≈ −90 mV. On retrouve la limite de Boyle et Conway.
- Avec bNa faible mais non nul : Vm est légèrement moins négatif que VK⁺. Pour le neurone, Vrepos ≈ −70 mV (au lieu de −90 mV).
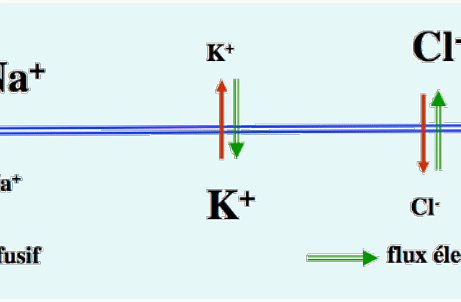
4. Gradients ioniques au repos
Les concentrations ioniques au repos (valeurs du cours Sorbonne UE3b) :
| Ion | Intérieur (mM) | Extérieur (mM) | Sens du gradient de concentration |
|---|---|---|---|
| Na⁺ | 15 | 140 | Entrée (ext → int) |
| K⁺ | 150 | 4 | Sortie (int → ext) |
| Cl⁻ | 4 | 120 | Entrée (ext → int) |
Ces gradients sont maintenus à l’état stationnaire par la pompe Na⁺/K⁺ ATPase (voir Leçon 2.3).
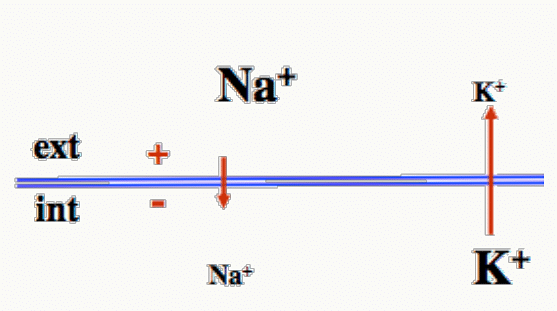
5. Bilan des flux au repos
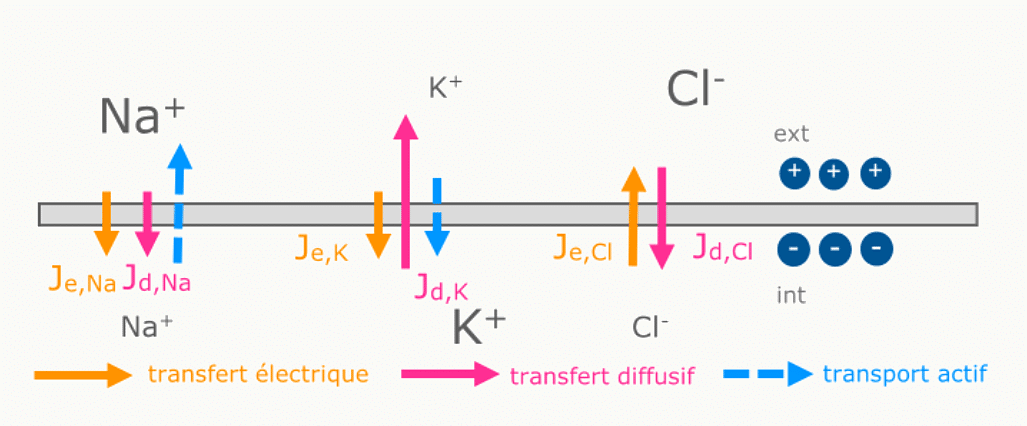
Au potentiel de repos, pour chaque ion, la somme algébrique de tous les flux est nulle :
Flux diffusif + Flux électrique + Flux actif (pompe) = 0
Cela signifie qu’il n’y a pas de courant net traversant la membrane. En pratique :
- K⁺ : tend à sortir par diffusion (fort dedans), est retenu par le champ électrique (intérieur négatif). Le flux net diffusif-électrique est faible et compensé par la pompe.
- Na⁺ : tend à entrer par diffusion (fort dehors) ET par le champ électrique (l’intérieur négatif attire Na⁺). Les deux flux sont dans le même sens — la pompe Na⁺/K⁺ expulse Na⁺ en contrepartie.
- Cl⁻ : Cl⁻ est à son potentiel d’équilibre de Nernst au repos. Son flux diffusif (entrant : fort dehors) est exactement compensé par son flux électrique (sortant : l’intérieur négatif repousse l’anion). Il n’y a pas de transport actif de Cl⁻ dans ce modèle.
🧠 À retenir absolument
- Potentiel de repos : Vm = Vint − Vext < 0 (−90 mV myocarde, −70 mV neurone, −30 à −60 mV muscle lisse).
- Boyle-Conway : hypothèse imperméabilité au Na⁺ → Vm → VK⁺ ≈ −90 mV ; limite = la membrane laisse passer un peu de Na⁺.
- Goldman : Vm = −(RT/F)·ln[(bNa[Na⁺]int + bK[K⁺]int) / (bNa[Na⁺]ext + bK[K⁺]ext)] ; au repos bNa/bK ≈ 1/75 à 1/100.
- Gradients : Na⁺ 15/140 mM, K⁺ 150/4 mM, Cl⁻ 4/120 mM (int/ext).
- Cl⁻ est à son potentiel d’équilibre au repos (pas de transport actif de Cl⁻).
- Au repos, flux net = 0 pour chaque ion (flux diffusif + électrique + actif = 0).
❓ Questions fréquentes
Pourquoi le potentiel de repos est-il négatif et non positif ?
L’intérieur de la cellule est riche en K⁺, qui tend à sortir par diffusion (gradient de concentration). En sortant, K⁺ emporte des charges positives et laisse un excès de charges négatives à l’intérieur. Par ailleurs, les protéines intracellulaires (chargées négativement) contribuent à la négativité de l’intérieur via l’effet Donnan. Ces deux facteurs imposent Vint < Vext, donc Vm négatif.
Qu’est-ce que le coefficient b dans l’équation de Goldman et comment l’interpréter ?
b est le coefficient de diffusion de l’ion dans la membrane (souvent noté P pour perméabilité dans les formulations alternatives). Il intègre à la fois la vitesse de diffusion de l’ion dans le milieu lipidique membranaire et la facilité d’entrée dans la membrane. Au repos, bNa ≪ bK (rapport ~ 1/75 à 1/100), ce qui signifie que la membrane est quasi-imperméable à Na⁺ et très perméable à K⁺. Lors d’un potentiel d’action, bNa augmente brutalement (ouverture des canaux Na⁺ voltage-dépendants).
Pourquoi Cl⁻ est-il à son potentiel d’équilibre au repos, mais pas Na⁺ ni K⁺ ?
Cl⁻ n’est pas pompé activement — sa distribution est dictée uniquement par l’équilibre électrochimique passif entre flux diffusif et flux électrique. Au potentiel de repos (−70 mV pour un neurone), le flux de Cl⁻ entrant (par gradient de concentration, Cl⁻ fort dehors) est exactement annulé par le flux électrique sortant (l’intérieur négatif repousse Cl⁻). En revanche, pour Na⁺, les flux diffusif et électrique sont tous les deux dirigés vers l’entrée — il faut la pompe pour maintenir l’équilibre.
Pourquoi le potentiel de repos du neurone (−70 mV) est-il moins négatif que VK⁺ (≈−90 mV) ?
Parce que la membrane au repos laisse passer une petite quantité de Na⁺ via des canaux de fuite. L’entrée de Na⁺ (ions positifs) atténue légèrement la négativité de l’intérieur. L’équation de Goldman traduit cet effet : avec bNa/bK ≈ 1/75, le terme Na⁺ « tire » le potentiel vers VNa⁺ (+60 mV) et décale le Vm de −90 mV vers −70 mV. Plus la perméabilité au Na⁺ augmente (dépolarisation), plus Vm se rapproche de VNa⁺.
Comment mesure-t-on concrètement le potentiel de repos ?
On utilise une microélectrode intracellulaire (micropipette en verre remplie de KCl 3 M, pointe < 1 µm) insérée dans la cellule. La différence de potentiel entre cette électrode (interne) et une électrode de référence placée dans le milieu extracellulaire donne directement Vint − Vext = Vm. La technique du patch-clamp (Neher et Sakmann, Nobel 1991) permet même de mesurer les courants d’un seul canal ionique et de fixer Vm à la valeur souhaitée (mode voltage-clamp).
🚀 Pour aller plus loin
Contenu pédagogique original — Réussir SVT. L’équipe Réussir SVT.