
Chapitre 6 — L’hémoglobine et le transport de l’oxygène · Topic 2 : Allostérie et régulation · Leçon 2.1
On a vu que la courbe de l’hémoglobine est sigmoïde à cause de la coopérativité. Mais comment, concrètement, une sous-unité « prévient-elle » les autres qu’elle vient de fixer un oxygène ? Cette leçon décrit le mécanisme moléculaire de la coopérativité et la notion clé qui en découle : l’allostérie, c’est-à-dire le passage entre deux états, T et R.
🎯 Objectifs pédagogiques
À la fin de cette leçon, tu sauras :
- décrire le mécanisme moléculaire de la coopérativité ;
- expliquer le rôle des ponts salins entre sous-unités ;
- définir les états T (tendu) et R (relâché) ;
- associer chaque état à une affinité et à une forme (désoxy / oxy) ;
- distinguer le modèle concerté du modèle séquentiel.
🧭 Plan de la leçon
- Le mécanisme moléculaire de la coopérativité
- Les deux états : T et R
- Les deux modèles de l’allostérie
1. Le mécanisme moléculaire de la coopérativité
Tout part d’un détail vu à la leçon 1.1 : la fixation de l’O₂ déplace le Fe²⁺ dans le plan de l’hème, et ce déplacement entraîne avec lui l’histidine proximale — donc toute la chaîne polypeptidique de la sous-unité.
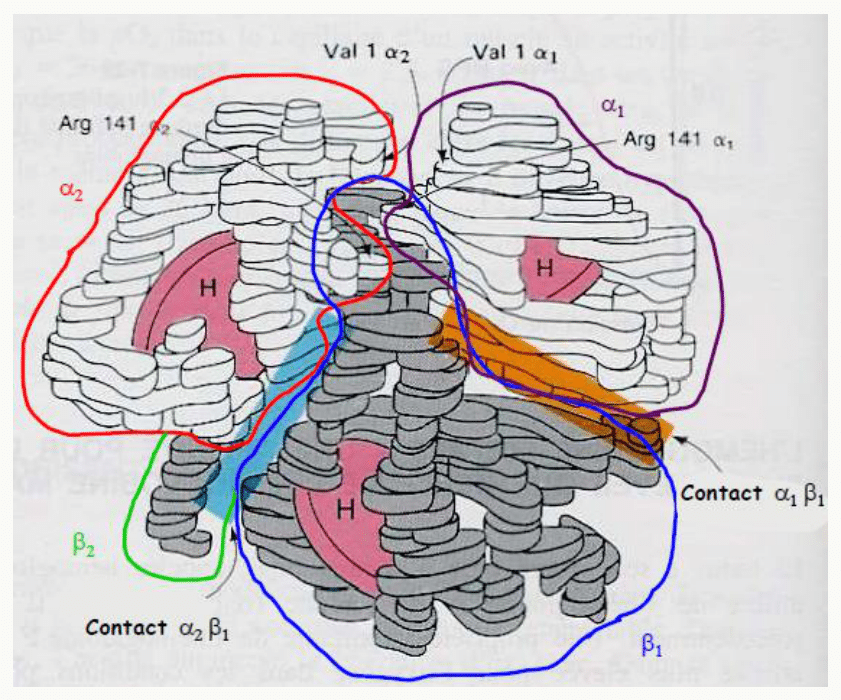
Ce changement de conformation est ensuite transmis de proche en proche, d’une sous-unité à l’autre, parce que les sous-unités sont reliées par des ponts salins (des liaisons entre résidus chargés). Les déplacements générés sur une sous-unité sont donc répercutés sur les autres.
La résultante globale est un mouvement du dimère α₁β₁ par rapport au dimère α₂β₂.
La fixation de l’O₂ déplace le Fe²⁺ → entraîne l’histidine proximale et la chaîne → transmise aux autres sous-unités par les ponts salins → mouvement du dimère α₁β₁ par rapport à α₂β₂. C’est la base moléculaire de la coopérativité.
2. Les deux états : T et R
En comparant les structures de l’oxyhémoglobine et de la désoxyhémoglobine, on découvre deux états moléculaires distincts. C’est le cœur de l’allostérie : une protéine allostérique existe sous deux formes, T et R.
| État T (tendu) | État R (relâché) | |
|---|---|---|
| Forme | Désoxyhémoglobine | Oxyhémoglobine |
| Affinité pour l’O₂ | Faible | Forte |
| Stabilisé par | Le CO₂, les protons (H⁺) et le 2,3-DPG | (la fixation de l’O₂) |
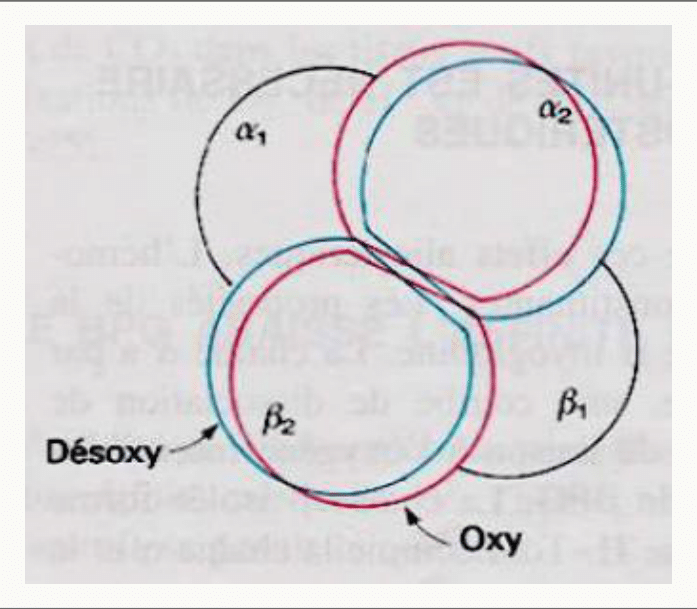
C’est le ratio entre ces deux états (T ↔ R) qui permet de moduler l’activité de l’hémoglobine. Le 2,3-DPG joue ici un rôle particulier : il bloque l’Hb en position T en se fixant dans l’espace libre entre les 4 sous-unités — c’est pourquoi il interfère avec la coopérativité (on y revient en leçon 2.2).
Ne confonds pas : T = Tendu = désoxy = faible affinité ; R = Relâché = oxy = forte affinité. Astuce : « Relâché = Riche en oxygène ». Le CO₂, les H⁺ et le DPG favorisent l’état T et donc la libération de l’oxygène.
3. Les deux modèles de l’allostérie
L’allostérie suppose donc que la protéine existe sous deux états, T et R. Deux modèles décrivent la transition entre ces états :
| Modèle | Principe |
|---|---|
| Modèle concerté (« tout ou rien » / symétrique) |
Toutes les sous-unités basculent en même temps de T vers R (la symétrie est conservée). |
| Modèle séquentiel | La fixation d’une 1ʳᵉ molécule d’O₂ entraîne un changement de conformation qui favorise la transformation de la sous-unité suivante (basculement progressif). |
Le concept d’allostérie et le modèle « concerté » ont été formalisés en 1965 par Jacques Monod, Jeffries Wyman et Jean-Pierre Changeux — c’est le célèbre modèle MWC. Monod et Changeux travaillaient à l’Institut Pasteur, à Paris ; la même année, Monod recevait le prix Nobel de physiologie ou médecine (pour ses travaux sur la régulation des gènes). L’hémoglobine reste, encore aujourd’hui, la protéine allostérique modèle.
Allostérie = 2 états : T (tendu, désoxy, faible affinité) et R (relâché, oxy, forte affinité). Modèle concerté (tout bascule ensemble) vs séquentiel (sous-unité après sous-unité). CO₂, H⁺ et DPG stabilisent T.
🧠 À retenir absolument
- Coopérativité : fixation O₂ → déplacement du Fe²⁺ → histidine proximale → transmission aux autres sous-unités par les ponts salins → mouvement du dimère α₁β₁ / α₂β₂.
- État T = tendu = désoxyHb = faible affinité ; stabilisé par CO₂, H⁺, DPG.
- État R = relâché = oxyHb = forte affinité.
- Le ratio T/R module l’activité ; le DPG bloque l’Hb en T (espace entre les 4 sous-unités).
- Deux modèles : concerté (tout ou rien, symétrique) et séquentiel (progressif).
❓ Questions fréquentes
Comment la fixation d’un O₂ est-elle transmise aux autres sous-unités ?
La fixation de l’O₂ déplace le fer (Fe²⁺) dans le plan de l’hème, ce qui entraîne l’histidine proximale et toute la chaîne. Comme les sous-unités sont reliées par des ponts salins (liaisons entre résidus chargés), ce changement de conformation se transmet de proche en proche, provoquant un mouvement du dimère α₁β₁ par rapport à α₂β₂.
Quelle est la différence entre l’état T et l’état R ?
L’état T (tendu) correspond à la désoxyhémoglobine et a une faible affinité pour l’oxygène ; il est stabilisé par le CO₂, les protons (H⁺) et le DPG. L’état R (relâché) correspond à l’oxyhémoglobine et a une forte affinité pour l’oxygène. Astuce : « Relâché = Riche en oxygène ».
Qu’est-ce qu’une protéine allostérique ?
C’est une protéine qui existe sous deux formes en équilibre (ici T et R) et dont l’activité se règle en déplaçant cet équilibre. L’hémoglobine en est le modèle : le ratio T/R module son affinité pour l’oxygène selon les conditions de l’organisme.
Quelle différence entre le modèle concerté et le modèle séquentiel ?
Dans le modèle concerté (« tout ou rien », symétrique), toutes les sous-unités basculent de T vers R en même temps. Dans le modèle séquentiel, la fixation d’une première molécule d’O₂ change la conformation d’une sous-unité, ce qui favorise la transformation de la suivante, et ainsi de suite.
Pourquoi le DPG interfère-t-il avec la coopérativité ?
Parce qu’il se fixe dans l’espace libre situé entre les quatre sous-unités et bloque l’hémoglobine en position T (faible affinité). En stabilisant l’état T, il s’oppose au passage vers R et module donc la coopérativité (voir leçon 2.2).
🚀 Pour aller plus loin
On sait maintenant ce que sont T et R ; voyons ce qui les déplace concrètement dans le corps.
Contenu pédagogique original — Réussir SVT. L’équipe Réussir SVT.