
Chapitre 4 — Le cycle cellulaire · Topic 2 : La phase G1 · Leçon 2.3
En G1, la cellule peut aussi renoncer à se diviser : sortir vers G0 ou se bloquer si son ADN est abîmé. Tout repose sur une balance entre facteurs mitogènes et CKI, et sur une surveillance assurée par p53. Cette leçon décrit ces freins.
🎯 Objectifs pédagogiques
À la fin de cette leçon, tu sauras :
- décrire le passage G1 → G0 et G0 → G1 ;
- expliquer la balance CKI / mitogènes ;
- décrire la destruction de p27 par le SCF ;
- décrire la surveillance de l’ADN en G1 ;
- expliquer le rôle de p53 et le blocage G1/S.
🧭 Plan de la leçon
- Sortir et revenir : G1 ↔ G0
- La destruction de p27 par le SCF
- La surveillance de l’ADN avant la phase S
1. Sortir et revenir : G1 ↔ G0
Le choix entre rester dans le cycle ou en sortir dépend d’une balance entre facteurs mitogènes et signaux inhibiteurs.
| Transition | Mécanisme |
|---|---|
| G1 → G0 (sortie) | Déclenchée par : inhibition de contact (cellules proches), action du TGF-β, signaux de sénescence ou de différenciation. Tous augmentent les CKI. |
| G0 → G1 (retour) | Accumulation de facteurs mitogènes → dégradation des CKI → passage du point R → entrée irréversible dans le cycle. |
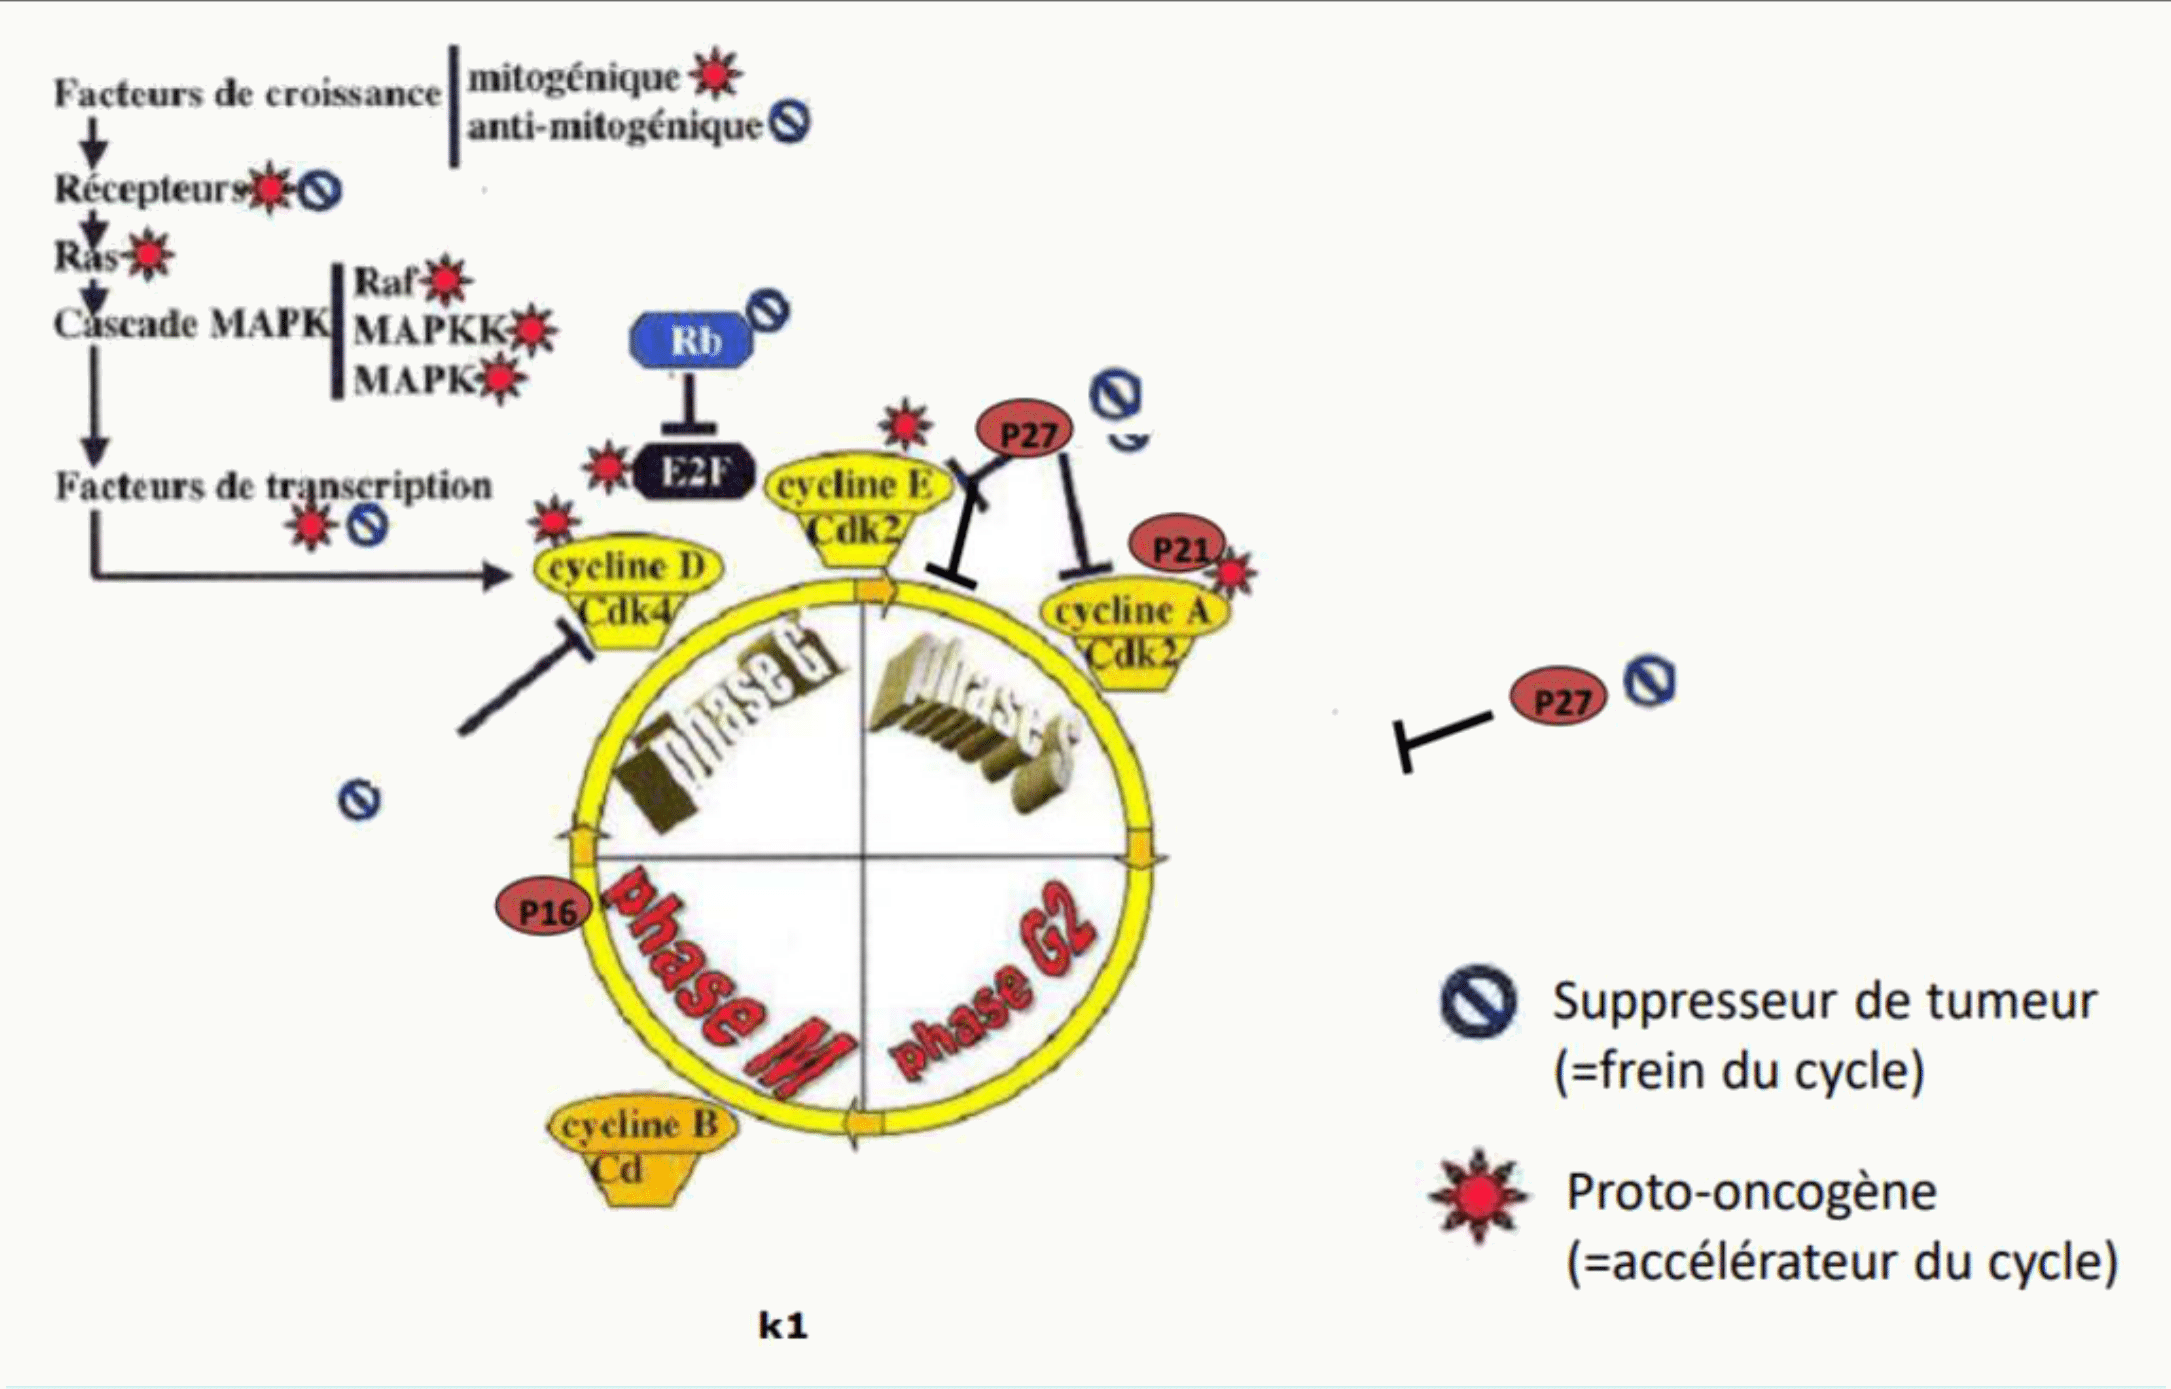
Les CKI inhibent l’activité catalytique des Cdk : ils contrebalancent l’effet des facteurs mitogènes et empêchent la cellule de poursuivre le cycle. À l’inverse, les facteurs mitogènes dégradent les CKI. Le résultat dépend de qui l’emporte : c’est une balance.
2. La destruction de p27 par le SCF
Comment lève-t-on l’inhibition d’un CKI ? Exemple avec p27, dégradé pour permettre la progression :
- cycline E/Cdk2 phosphoryle p27 ;
- p27 phosphorylée sort du noyau et est reconnue par le complexe protéique SCF (sous-unités Skp1, Culline, boîte F) ;
- le SCF ubiquitine p27 (ajoute des molécules d’ubiquitine) ; il ne reconnaît que certaines protéines phosphorylées (spécificité) ;
- les protéines ubiquitinées sont dirigées vers le protéasome (gros complexe à protéases) → protéolyse en fragments.
L’ubiquitination est un véritable « marquage » : ajouter de l’ubiquitine sur une protéine, c’est lui coller l’étiquette « à détruire ». Le protéasome reconnaît ce signal et dégrade la protéine. Ce système permet à la cellule de retirer rapidement un régulateur (ici un frein, p27) au bon moment.
3. La surveillance de l’ADN avant la phase S
Tant que la chromatine est accessible en G1, la cellule vérifie que l’ADN est en bon état. Des problèmes peuvent survenir (lésion = cassure simple brin, ou cassure double brin), dus à des facteurs externes (molécules chimiques, UV…). En cas de problème, des kinases de réparation (ce ne sont pas des Cdk) sont activées et déclenchent deux types de réponses :
Réponse immédiate (rapide, uniquement des phosphorylations) :
- les kinases de réparation phosphorylent Cdc25 ;
- Cdc25 phosphorylée est reconnue par le SCF, ubiquitinée, puis détruite par le protéasome ;
- sans Cdc25, le complexe Cdk2/cycline E n’est plus activé (Wee1 prend le dessus).
Réponse tardive (plus longue, nécessite une synthèse de protéines) :
- les kinases activent p53 par phosphorylation (facteur de transcription qui devient stable) ;
- p53 se fixe sur l’ADN et induit la synthèse de CKI (comme p21), qui inhibe Cdk2/cycline E.
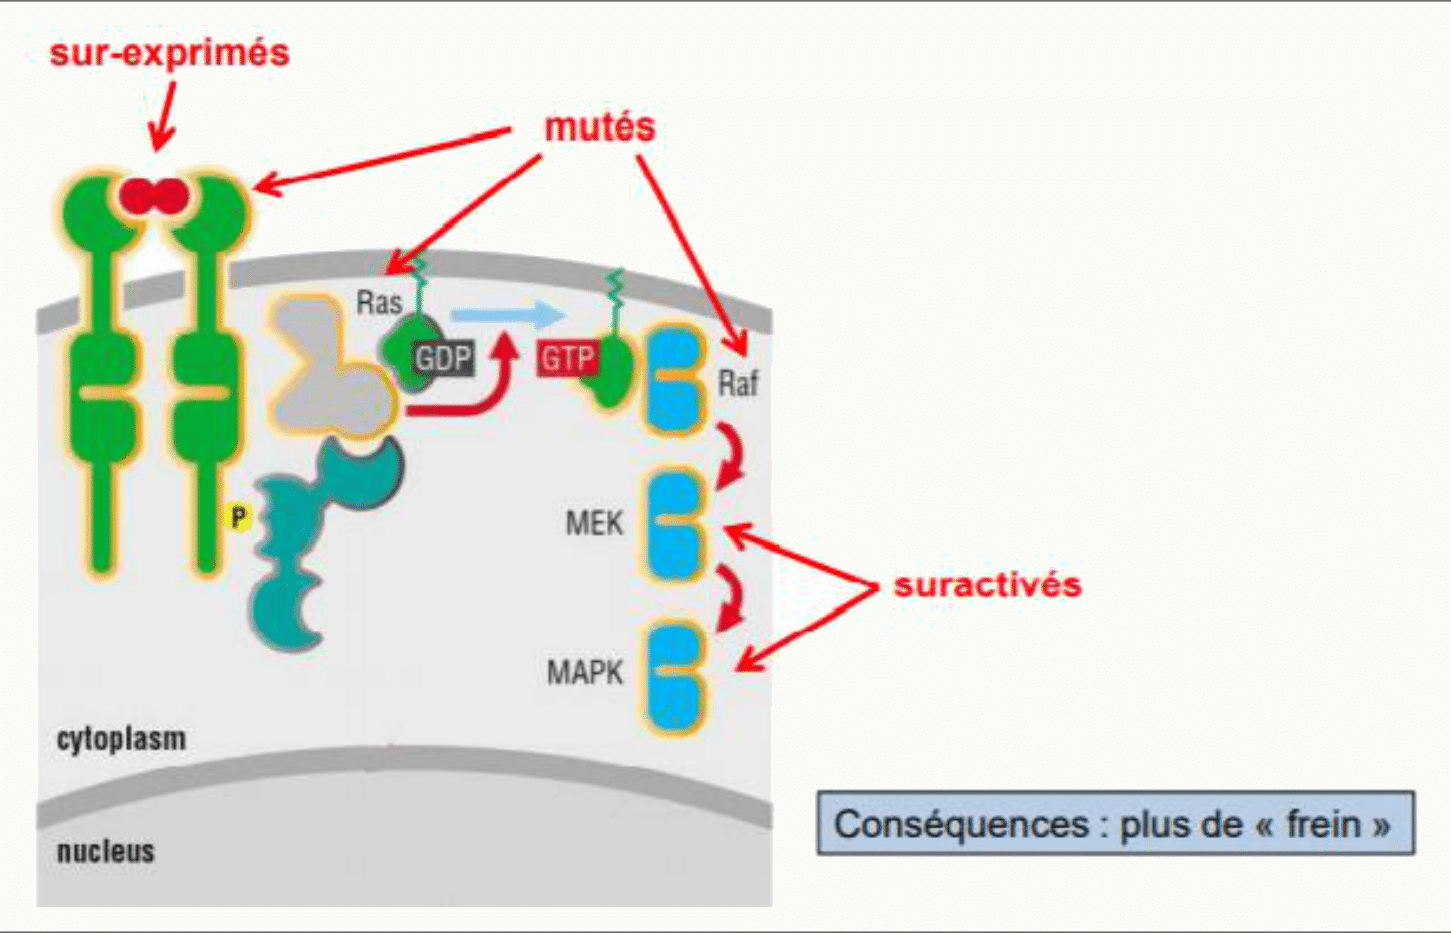
Dans les deux cas, la cellule est bloquée en G1/S : pas d’entrée en phase S tant que l’ADN n’est pas réparé. Ce délai laisse le temps de réparer ; si les réparations échouent, le cycle peut s’arrêter définitivement ou la cellule mourir. Une voie MAPK mutée (cancer) peut au contraire forcer la division d’une cellule anormale.
🧠 À retenir absolument
- G1 → G0 : inhibition de contact, TGF-β, sénescence/différenciation → ↑ CKI. G0 → G1 : facteurs mitogènes → dégradation des CKI → point R.
- Balance CKI / mitogènes : les CKI inhibent les Cdk et contrebalancent les mitogènes.
- Destruction de p27 : cycline E/Cdk2 phosphoryle p27 → SCF (Skp1/Culline/boîte F) ubiquitine → protéasome.
- Surveillance de l’ADN (kinases de réparation, pas des Cdk) : réponse immédiate (Cdc25 dégradé → pas d’activation Cdk2/cyc E) ; réponse tardive (p53 → p21 → inhibe Cdk2/cyc E).
- Résultat : blocage en G1/S (pas d’entrée en S) le temps de réparer ; sinon arrêt définitif ou mort.
❓ Questions fréquentes
Qu’est-ce qui fait sortir une cellule de G1 vers G0 ?
L’inhibition de contact (cellules trop proches), l’action du TGF-β et des signaux de sénescence ou de différenciation. Tous ces signaux augmentent les CKI, qui inhibent les Cdk et empêchent la cellule de poursuivre le cycle. À l’inverse, les facteurs mitogènes dégradent les CKI pour la faire revenir en G1.
Comment p27 est-elle détruite ?
La cycline E/Cdk2 phosphoryle p27, qui sort alors du noyau. Le complexe SCF (Skp1, Culline, boîte F) reconnaît spécifiquement p27 phosphorylée et l’ubiquitine. La protéine ubiquitinée est ensuite adressée au protéasome, qui la dégrade en fragments.
Quel est le rôle de p53 lors d’une lésion de l’ADN ?
p53 est un facteur de transcription. Lors d’une lésion, des kinases de réparation le phosphorylent et le stabilisent. p53 se fixe alors sur l’ADN et induit la synthèse de CKI comme p21, qui inhibe Cdk2/cycline E : c’est la réponse tardive qui bloque la cellule en G1/S.
Pourquoi la cellule se bloque-t-elle en G1/S après une cassure d’ADN ?
Pour éviter de répliquer un ADN endommagé. La réponse immédiate (dégradation de Cdc25) et la réponse tardive (p53 → p21) inhibent toutes deux Cdk2/cycline E, empêchant l’entrée en phase S. Ce délai laisse le temps de réparer ; si la réparation échoue, le cycle s’arrête définitivement ou la cellule meurt.
🚀 Pour aller plus loin
L’ADN est validé : la cellule peut le répliquer. Direction la phase S.
Contenu pédagogique original — Réussir SVT. L’équipe Réussir SVT.