
Chapitre 9 — Contrôle de la croissance · Topic 1 · Leçon 1.4
La croissance fœtale est GH-indépendante. Elle repose principalement sur le système IGF (Insulin-like Growth Factors), à côté de l’insuline, de la hPL et des hormones thyroïdiennes. Cette leçon décortique le système IGF, ses acteurs, ses récepteurs, l’empreinte génomique parentale et son rôle spécifique dans la vie fœtale.
🎯 Objectifs pédagogiques
- Comprendre pourquoi la croissance fœtale est GH-indépendante ;
- Identifier IGF-I, IGF-II, leurs récepteurs (IGF1R, IGF2R) et les protéines de liaison (IGFBP) ;
- Comprendre la notion d’empreinte génomique parentale pour IGF-II ;
- Lister les facteurs non-hormonaux (nutrition, oxygénation, génétique).
🧭 Plan de la leçon
- Pourquoi la croissance fœtale est GH-indépendante
- Le système IGF : IGF-I, IGF-II, récepteurs, IGFBP
- Empreinte génomique parentale d’IGF-II
- Autres facteurs : insuline, nutrition, oxygénation, génétique
1. Pourquoi la croissance fœtale est GH-indépendante
Contrairement à la croissance post-natale, la croissance fœtale ne dépend pas de la GH. Arguments :
- Les fœtus anencéphales (sans hypophyse) ont une taille de naissance normale ;
- Les enfants atteints de déficit congénital en GH naissent avec une taille normale et ne présentent le retard statural qu’à partir de 6-12 mois ;
- Le récepteur à la GH n’est pas ou peu exprimé dans les tissus fœtaux.
La croissance fœtale repose donc sur d’autres régulateurs : système IGF (IGF-II dominant en fœtal), insuline, hPL, hormones thyroïdiennes fœtales, apport nutritionnel maternel.
2. Le système IGF : IGF-I, IGF-II, récepteurs, IGFBP
Deux facteurs de croissance peptidiques structurellement proches de la proinsuline (d’où le nom « Insulin-like Growth Factors ») :
- IGF-I : sécrété par le foie sous stimulation de la GH (chez l’enfant/adulte, pas chez le fœtus). En période fœtale, IGF-I est présent mais son rôle est plus limité. Il augmente en fin de gestation et devient prédominant après la naissance.
- IGF-II : facteur prédominant en période fœtale. Sécrété par de nombreux tissus (placenta, foie fœtal, tissus embryonnaires). Régule la prolifération et la différenciation cellulaire.
| Récepteur | Ligand principal | Effet |
|---|---|---|
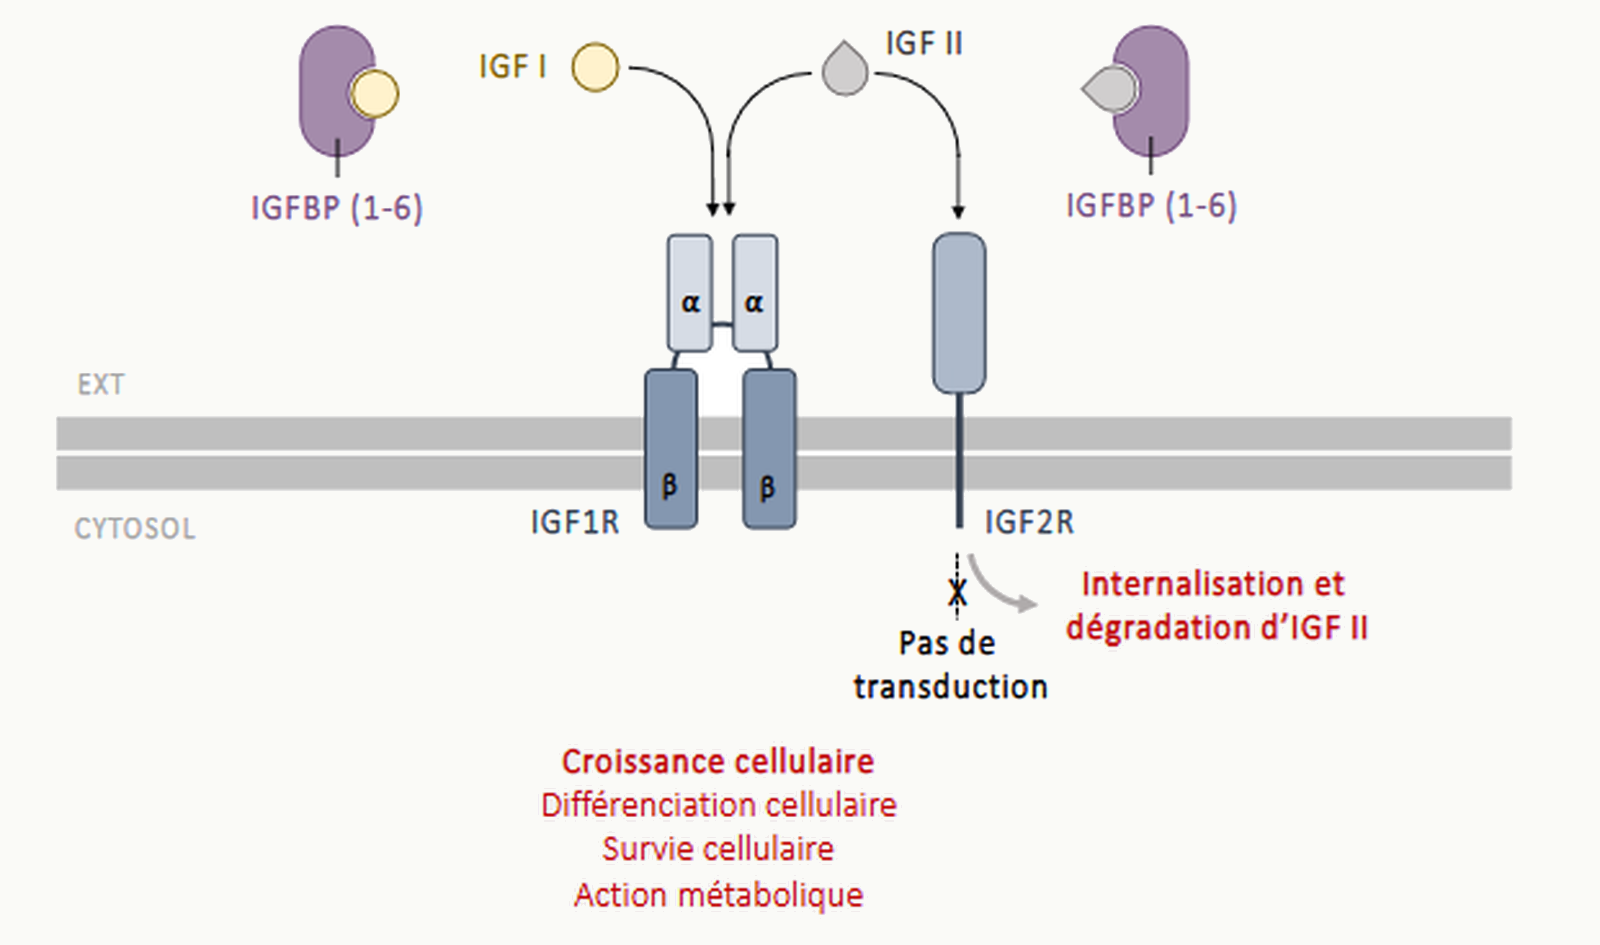
| IGF1R | IGF-I ≥ IGF-II | Récepteur à tyrosine kinase → prolifération, croissance, anti-apoptose |
| IGF2R (= récepteur mannose-6-P) | IGF-II | Récepteur « épurateur » : internalise IGF-II et le dégrade → régule à la baisse le taux d’IGF-II |
| Récepteur insuline | Insuline > IGF-I | Effets métaboliques |
Point important : IGF2R n’est pas un récepteur signalisateur ; il fonctionne comme un « puits » qui limite la quantité d’IGF-II circulante.
6 protéines (IGFBP-1 à 6) qui lient les IGF dans la circulation et modulent leur biodisponibilité :
- Prolongent leur demi-vie (99 % des IGF circulants sont liés) ;
- Limitent leur action systémique (empêchent les hypoglycémies) ;
- Peuvent avoir des rôles propres (IGFBP-3 est la plus abondante).
3. Empreinte génomique parentale d’IGF-II
L’empreinte génomique parentale (imprinting) est un phénomène où seul l’allèle d’origine paternelle ou maternelle est exprimé pour certains gènes (l’autre est silencé par méthylation).
- IGF-II : allèle paternel exprimé, allèle maternel silencé ;
- IGF2R : allèle maternel exprimé, allèle paternel silencé (chez la souris).
Interprétation évolutive (théorie du conflit parental) : le père a intérêt à ce que son enfant soit grand (favorise sa propre descendance) → IGF-II paternel (croissance). La mère a intérêt à limiter la taille pour préserver sa santé et ses futures grossesses → IGF2R maternel (frein). Un vrai duel génétique !
- Syndrome de Beckwith-Wiedemann : perte d’empreinte (les 2 allèles d’IGF-II sont exprimés) → macrosomie fœtale, macroglossie, hyperinsulinisme, prédisposition aux tumeurs.
- Syndrome de Silver-Russell : hypoexpression d’IGF-II → retard de croissance intra-utérin, petite taille, dysmorphie.
4. Autres facteurs : insuline, nutrition, oxygénation, génétique
L’insuline fœtale (produite par le pancréas fœtal dès le 5e mois) a un effet trophique majeur : elle stimule la croissance en agissant sur les récepteurs IGF-I fœtaux (« insulin/IGF-I cross-talk »). D’où :
- Bébés de mère diabétique : hyperglycémie maternelle → hyperinsulinisme fœtal → macrosomie (poids > 4 kg) ;
- Diabète néonatal ou déficit sévère en insuline → retard de croissance intra-utérin.
- Nutrition maternelle : dénutrition ou malabsorption → RCIU (Retard de Croissance Intra-Utérin) harmonieux (petite taille + petit poids proportionnels).
- Qualité des échanges placentaires : insuffisance placentaire (pré-éclampsie, HTA maternelle, tabagisme) → RCIU dysharmonieux (poids << taille, redistribution vasculaire fœtale au profit du cerveau — « brain sparing »).
- Oxygénation : hypoxie chronique → RCIU.
- Génétique parentale (taille cible = moyenne parentale ± 6,5 cm) ;
- Sexe : les garçons naissent en moyenne 100-200 g plus lourds ;
- Multiparité, âge maternel, ethnie ;
- Infections (TORCH), toxiques (alcool, tabac), tératogènes.
🧠 À retenir absolument
- Croissance fœtale = GH-indépendante. Arguments : anencéphaliques et déficits congénitaux en GH naissent normaux.
- IGF-II dominant en fœtal, IGF-I plus important après la naissance.
- Récepteurs : IGF1R (signalisation, tyrosine kinase) ; IGF2R = récepteur mannose-6-P = « épurateur » d’IGF-II.
- IGFBP (6 protéines) : transportent les IGF, prolongent demi-vie, modulent action.
- Empreinte parentale : IGF-II = allèle paternel exprimé ; IGF2R = allèle maternel exprimé. Beckwith-Wiedemann (macrosomie) vs Silver-Russell (RCIU).
- Insuline fœtale = facteur trophique majeur ; macrosomie chez les bébés de mère diabétique.
- RCIU harmonieux (dénutrition) vs dysharmonieux (insuffisance placentaire, brain sparing).
❓ Questions fréquentes
Pourquoi appelle-t-on ces facteurs « insulin-like » ?
Parce que IGF-I et IGF-II sont structurellement très proches de la proinsuline (~50 % d’homologie). Ils peuvent d’ailleurs se lier faiblement au récepteur de l’insuline, et l’insuline peut se lier faiblement à IGF1R. Fonctionnellement, ils ont des effets métaboliques (moindres que l’insuline) et surtout mitogéniques (majeurs, contrairement à l’insuline).
Comment IGF2R « limite » IGF-II ?
IGF2R (aussi appelé récepteur au mannose-6-P) n’est pas un récepteur de signalisation : il n’active pas de voie intracellulaire. Il fixe IGF-II à la surface cellulaire, puis l’internalise par endocytose et le dirige vers les lysosomes pour dégradation. Fonctionnellement, il agit comme un « puits » qui abaisse la concentration d’IGF-II circulante. Sa perte est donc mitogène (voir Beckwith-Wiedemann).
Qu’est-ce que le « brain sparing » en cas de RCIU dysharmonieux ?
Lorsque le placenta est insuffisant (pré-éclampsie), le fœtus redirige préférentiellement son débit sanguin vers les organes vitaux — le cerveau en priorité, puis le cœur et les surrénales — au détriment du foie, du muscle et des viscères. Résultat : le périmètre crânien reste préservé pendant que le poids et le périmètre abdominal chutent. C’est un mécanisme d’adaptation ancien qui protège le développement neurologique, mais il a un coût métabolique à long terme (risque accru de syndrome métabolique, hypothèse de Barker).
Pourquoi la théorie du conflit parental est-elle plausible ?
Parce que les intérêts génétiques du père et de la mère divergent en cas de paternité multiple. Le père transmet ses gènes à un seul enfant à la fois et bénéficie de sa croissance maximale. La mère investit dans plusieurs enfants au fil de sa vie et bénéficie de limiter la taille de chacun pour préserver ses ressources. Les gènes soumis à empreinte reflètent ce conflit : ceux qui favorisent la croissance (IGF-II) sont d’origine paternelle, ceux qui la freinent (IGF2R) d’origine maternelle. Cette théorie de Haig (1993) est très solide.
🚀 Pour aller plus loin
Contenu pédagogique original — Réussir SVT. L’équipe Réussir SVT.