
Chapitre 2 — Compartiments liquidiens · Topic 2 : Distribution et mesure des volumes · Leçon 2.3
On ne peut pas « ouvrir » l’organisme pour mesurer directement le volume d’un compartiment liquidien. La méthode de référence repose sur la dilution d’un traceur : on injecte une substance qui se répartit sélectivement dans le compartiment à mesurer, puis on dose sa concentration à l’équilibre. Cette leçon décrit aussi le bilan hydrique, c’est-à-dire l’équilibre entre entrées et sorties d’eau.
🎯 Objectifs pédagogiques
À la fin de cette leçon, tu sauras :
- énoncer le principe de dilution et les 4 étapes du protocole ;
- appliquer la formule de calcul du volume (traceur exogène et endogène) ;
- citer les traceurs pour chaque compartiment ;
- distinguer mesure directe et mesure indirecte ;
- décrire les entrées et sorties d’eau de l’organisme.
🧭 Plan de la leçon
- Principe et protocole de la dilution de traceurs
- Traceurs et mesures directes / indirectes
- Le bilan hydrique de l’organisme
1. Principe et protocole de la dilution de traceurs
Le traceur utilisé doit être :
- chimiquement inerte et non toxique ;
- non métabolisé par l’organisme ;
- suffisamment petit pour ne pas faire varier le volume du compartiment ;
- capable de se répartir uniformément dans la totalité du compartiment à mesurer, sans diffuser dans d’autres compartiments.
Le traceur est toujours injecté dans le compartiment plasmatique (voie intraveineuse).
Le protocole comporte 4 étapes :
- Injection d’une quantité Qinj de traceur dans le compartiment plasmatique.
- Délai d’homogénéisation avec recueil des excrétas éventuels (urines) en quantité Qexc.
- Prélèvement sanguin et mesure de la concentration molale plasmatique du traceur à l’équilibre Céq.
- Calcul du volume V du compartiment.
V = (Qinj − Qexc) / (Céq − C0)
avec C0 = concentration molale plasmatique normale du traceur avant injection. Pour un traceur exogène (non présent naturellement) : C0 = 0, donc V = (Qinj − Qexc) / Céq. Si le traceur n’est pas excrété : Qexc = 0 et V = Qinj / Céq.
Le prélèvement de sang donne accès au plasma (surnageant après centrifugation), pas au sang total. Pour obtenir le volume de plasma à partir du volume de sang prélevé, il faut utiliser l’hématocrite : Vplasma = Vsang × (1 − Ht). Exemple : 10 mL de sang avec Ht = 0,30 → 7 mL de plasma.
2. Traceurs et mesures directes / indirectes
| Compartiment | Traceurs endogènes marqués | Traceurs exogènes |
|---|---|---|
| Eau totale (V) | Urée marquée* | Eau deutérée (distribuée en 3 h), antipyrine |
| Volume plasmatique (Vp) | Albumine marquée | Bleu Evans, vert d’indocyanine |
| Eau extracellulaire (VEC) | Na+* (pénètre peu les cellules) | Sulfate SO42−* (plus fiable), mannitol |
| Volume globulaire | Tc-globules rouges | — |
Certains compartiments ne peuvent être mesurés que par soustraction (mesure indirecte) :
- Eau intracellulaire (VIC) = V − VEC
- Eau interstitielle (Vint) = VEC − Vp
Dans les exercices, les quantités Qinj et Qexc peuvent être exprimées en grammes, en moles ou en becquerels (Bq). La concentration Céq doit être dans la même unité : g/L de surnageant, mol/L de surnageant, ou Bq/L. Pour convertir entre concentration massique et molaire, on utilise la masse molaire : cmassique = cmolaire × M. Attention : la masse molaire est celle de l’entité avant dissociation (ion + contre-ion).
Le bleu Evans (T-1824) est un colorant vital qui se fixe à l’albumine plasmatique. Injecté par voie IV, il reste confiné dans le compartiment vasculaire car l’albumine ne traverse pas la paroi capillaire. C’est l’un des plus anciens traceurs de volume plasmatique, utilisé dès les années 1940. L’eau deutérée (D2O), quant à elle, se distribue dans la totalité de l’eau corporelle en seulement 3 heures car elle traverse librement toutes les membranes (source : Ganong’s Review of Medical Physiology, 26e éd.).
3. Le bilan hydrique de l’organisme
Le maintien d’une hydratation adéquate est nécessaire au métabolisme : l’eau est un nutriment de premier ordre. Les entrées et sorties d’eau doivent s’équilibrer pour que le bilan hydrique soit nul.
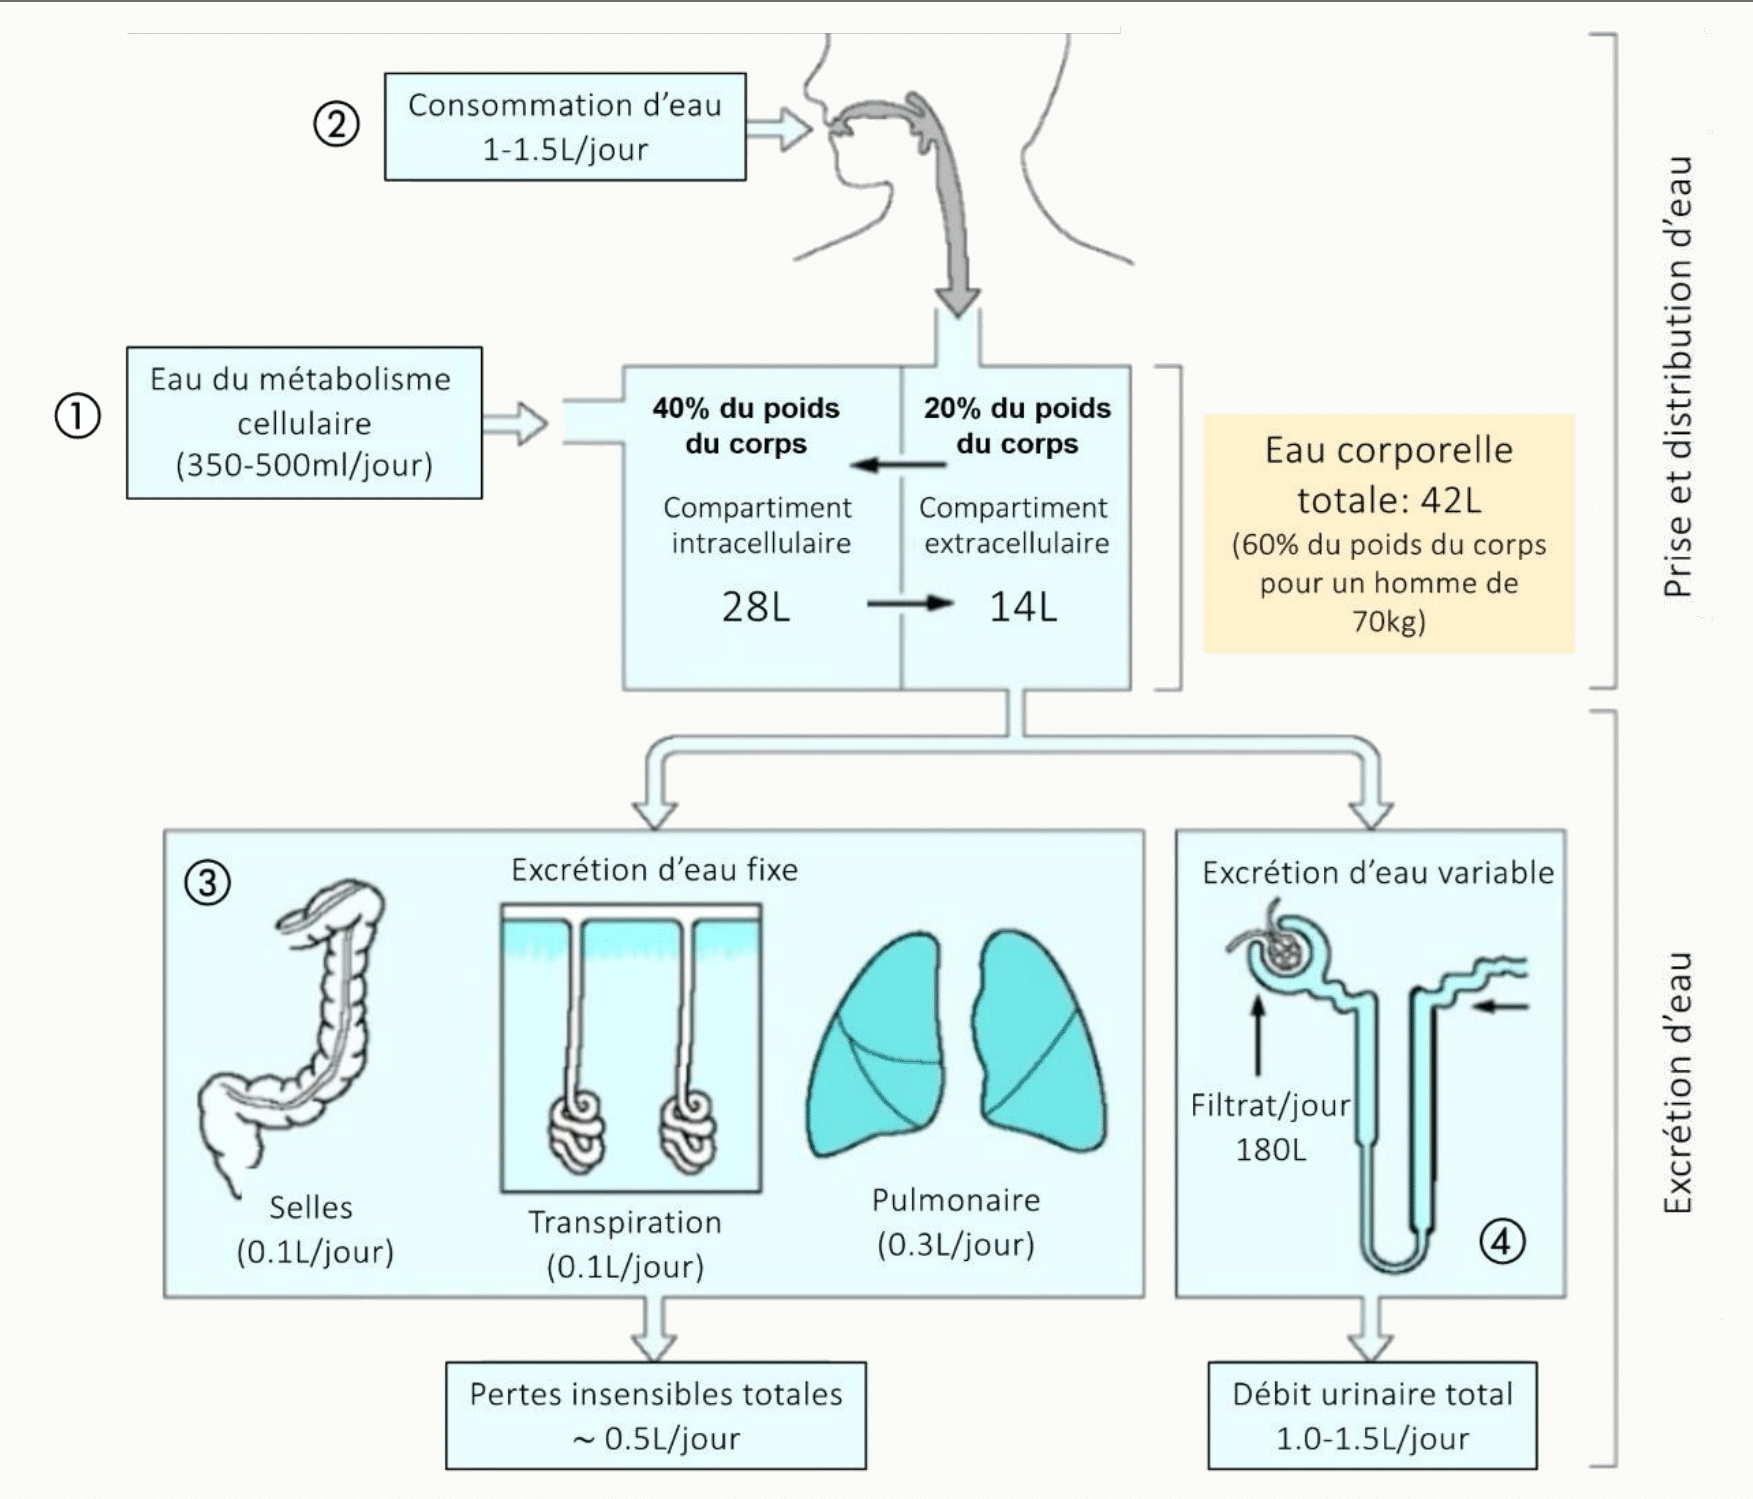
Entrées d’eau
- Apports endogènes (~350-500 mL/j) : eau d’oxydation produite par le métabolisme des protéines, glucides et lipides (ex. : glucose + O2 → CO2 + H2O + ATP). Relativement constants.
- Apports exogènes (~1-3 L/j) : eau de boisson et eau contenue dans les aliments, variables d’un jour à l’autre, déterminés par la sensation de soif. L’absorption digestive de l’eau est rapide (< 30 min) et efficace (~100 %), principalement au niveau de l’estomac et du duodénum.
Sorties d’eau
- Sorties extrarénales (~500 mL/j), non régulées (dites « insensibles » car non perçues) : pertes cutanées (transpiration), respiratoires (~300 mL/j), digestives (fèces, ~100 mL/j). Variables selon température, hygrométrie et activité physique.
- Sorties rénales (~1-2,5 L/j), seules régulées : sur les 180 L/j filtrés par les glomérules, plus de 99 % de l’eau est réabsorbée le long du néphron. Environ 1 % de la charge filtrée constitue l’urine définitive.
La réabsorption de l’eau (en % de la charge filtrée) diminue le long du néphron :
| Segment tubulaire | % d’eau réabsorbée | Remarque |
|---|---|---|
| Tubule contourné proximal (TCP) | ~70 % | Réabsorption obligatoire |
| Branche fine descendante de Henlé | ~20 % | Perméable à l’eau |
| Branche large ascendante de Henlé | 0 % | Imperméable à l’eau (réabsorbe le Na+) |
| TCD | Négligeable | — |
| Canal collecteur (CC) | 5-10 % | Segment d’ajustement (régulé par l’ADH) |
La branche large ascendante de l’anse de Henlé est imperméable à l’eau (elle réabsorbe du sodium, pas de l’eau). Ne pas confondre avec la branche fine descendante, qui elle est perméable à l’eau.
| Entrées | Volume (mL/j) | Sorties | Volume (mL/j) |
|---|---|---|---|
| Eau de boisson | ~1 000-1 500 | Diurèse (rénale, régulée) | ~1 000-2 500 |
| Eau des aliments | ~500-1 000 | Pertes cutanées (transpiration) | ~100-200 |
| Eau d’oxydation (endogène) | ~350-500 | Pertes respiratoires | ~300 |
| Pertes digestives (fèces) | ~100 | ||
| Total entrées | ~2 000-2 500 | Total sorties | ~2 000-2 500 |
Les pertes cutanées et respiratoires varient fortement avec la température, l’hygrométrie et l’activité physique.
En situation physiologique, les apports endogènes d’eau (~500 mL) compensent globalement les sorties extrarénales (~500 mL).
Le volume urinaire est donc proche des apports exogènes d’eau.
L’ADH (hormone antidiurétique, ou vasopressine) est sécrétée par la post-hypophyse en réponse à une augmentation de l’osmolalité plasmatique. Son seuil de sécrétion (~280-285 mOsm/kg) est inférieur au seuil de la soif (~295-300 mOsm/kg) : l’organisme concentre d’abord les urines avant de déclencher la sensation de soif (source : cours UE3P Sorbonne Université).
🧠 À retenir absolument
- Dilution : V = (Qinj − Qexc) / (Céq − C0). Traceur exogène → C0 = 0.
- Mesures directes : eau totale (eau deutérée), Vp (albumine marquée / bleu Evans), VEC (Na+* / sulfate).
- Mesures indirectes : VIC = V − VEC ; Vint = VEC − Vp.
- Bilan hydrique nul : entrées (endogènes ~0,5 L + exogènes ~2 L) = sorties (extrarénales ~0,5 L + rénales ~2 L).
- Sorties rénales = seules régulées ; branche ascendante large de Henlé = imperméable à l’eau.
❓ Questions fréquentes
Pourquoi le traceur est-il toujours injecté dans le plasma ?
Parce que le plasma est le seul compartiment directement accessible par voie intraveineuse. Le traceur diffuse ensuite vers le compartiment cible selon ses propriétés physico-chimiques.
Pourquoi le sulfate est-il plus fiable que le Na+ pour mesurer le VEC ?
Parce que le Na+ pénètre un peu dans les cellules (pompe Na+/K+ ATPase), ce qui surestime légèrement le VEC. Le sulfate, lui, ne franchit pas du tout la membrane cellulaire.
Pourquoi ne peut-on pas mesurer directement l’eau intracellulaire ?
Parce qu’aucun traceur ne reste exclusivement confiné dans le compartiment intracellulaire : tout traceur injecté par voie veineuse traverse d’abord le plasma. On calcule donc le VIC par soustraction : V total – VEC.
Comment l’organisme ajuste-t-il les sorties d’eau aux entrées ?
Par la régulation rénale : l’hormone antidiurétique (ADH) adapte la réabsorption d’eau dans le canal collecteur. Si l’on boit beaucoup, l’ADH diminue et les urines sont diluées ; si l’on boit peu, l’ADH augmente et les urines se concentrent.
Pourquoi le bleu Evans reste-t-il confiné dans le compartiment plasmatique ?
Parce que le bleu Evans se lie fortement à l’albumine plasmatique dès son injection intraveineuse. Or l’albumine ne traverse pas la paroi capillaire (membrane dialysante imperméable aux macromolécules). Le traceur reste donc piégé dans le plasma, ce qui en fait un marqueur fiable du volume plasmatique.
🚀 Pour aller plus loin
La composition ionique détaillée de chaque compartiment est essentielle pour comprendre les échanges transmembranaires :
Contenu pédagogique original — Réussir SVT. L’équipe Réussir SVT.