
Chapitre 2 — Compartiments liquidiens · Topic 3 : Échanges et osmose · Leçon 3.3
Après les échanges plasma-interstitium (Starling), il faut comprendre les échanges entre le milieu extracellulaire et le milieu intracellulaire. Ces échanges reposent sur l’osmose et sont finement régulés par l’hormone antidiurétique (ADH ou vasopressine), qui ajuste la perméabilité rénale à l’eau. Cette leçon décrit les transports membranaires du soluté et du solvant, le mécanisme de l’osmose, et la boucle de régulation de l’osmolalité efficace.
🎯 Objectifs pédagogiques
À la fin de cette leçon, tu sauras :
- distinguer les quatre types de transport transmembranaire du soluté ;
- expliquer le mécanisme de l’osmose et son lien avec l’osmolalité ;
- définir l’osmolalité efficace et son rôle de variable régulée ;
- décrire la boucle de régulation osmorécepteurs → ADH → aquaporines ;
- prédire l’effet d’un apport d’osmoles ou d’eau sur les volumes des compartiments.
🧭 Plan de la leçon
- Transports transmembranaires du soluté
- Osmose : transport du solvant
- Osmolalité efficace et régulation de l’hydratation cellulaire
- La boucle ADH : osmorécepteurs, sécrétion et aquaporines
1. Transports transmembranaires du soluté
Le transport de solutés à travers la membrane cellulaire est essentiel pour apporter à la cellule énergie et substrats (glucose, O2) et évacuer sécrétions et déchets (CO2, urée). On distingue quatre grands types de transport :
| Type | Énergie | Spécificité | Saturable | Régulé | Vitesse |
|---|---|---|---|---|---|
| Diffusion simple | Passive (gradient de C) | Non | Non | Non | Lente |
| Diffusion facilitée — canal | Passive (gradient électrochimique) | Oui (un type d’ion) | Oui | Oui | Très rapide |
| Diffusion facilitée — transporteur | Passive (gradient de C) | Très spécifique | Oui | Oui | Moins rapide |
| Transport actif | ATP ou couplage | Très spécifique | Oui | Oui | Lent |
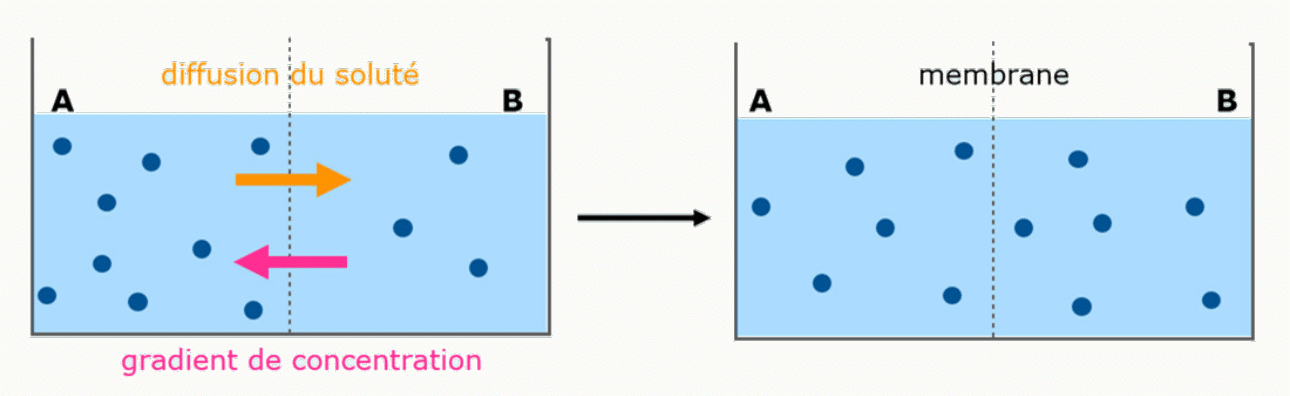
La diffusion simple obéit à la loi de Fick :
J = −D × S × (ΔC / Δx)
J = débit molaire (mol/s), D = coefficient de diffusion (m2/s), S = surface de la membrane (m2), ΔC = différence de concentration molale (mol/m3), Δx = épaisseur de la membrane.
Le signe «−» indique que le flux va dans le sens opposé au gradient (du plus concentré vers le moins concentré).
Le coefficient de diffusion D = R × T × bi (R = constante des gaz parfaits, T = température, bi = mobilité mécanique molaire). Conséquences :
- D augmente avec la température → le flux diffusif augmente.
- Si la masse molaire augmente, la mobilité diminue → le flux diminue.
- Au-delà d’une certaine taille (point de coupure), la molécule ne passe plus.
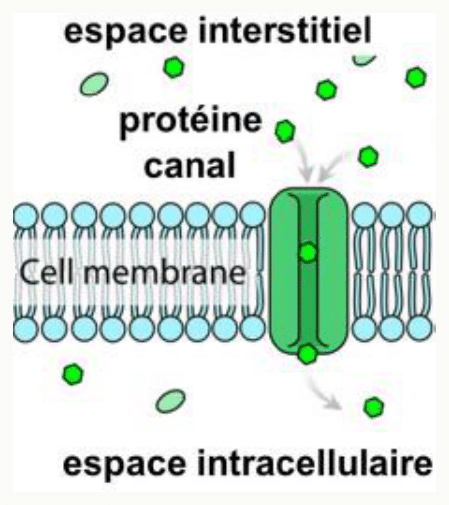
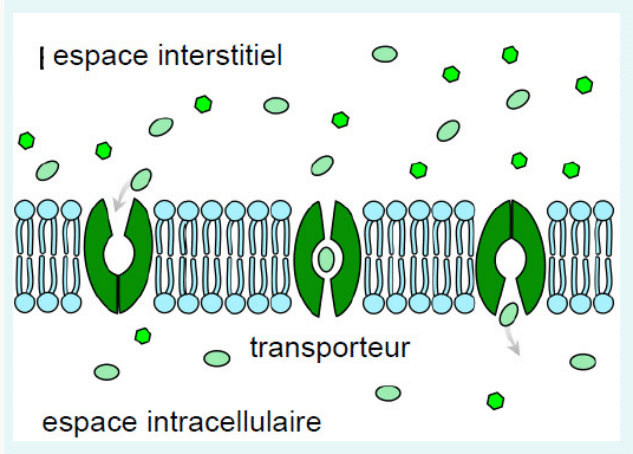
Le transport actif se fait dans le même sens que le gradient de concentration (du moins concentré vers le plus concentré), c’est-à-dire contre le gradient électrochimique. Il nécessite une dépense d’énergie (ATP pour la pompe Na+/K+-ATPase, ou couplage ionique pour les symporteurs/antiporteurs).
2. Osmose : transport du solvant
Le solvant (l’eau) se déplace à travers les membranes selon deux mécanismes :
| Mécanisme | Moteur | Direction du flux d’eau |
|---|---|---|
| Osmose | Différence de concentration en solutés (ΔC) | Du compartiment à faible osmolalité vers celui à haute osmolalité |
| Filtration (convection) | Différence de pression hydrostatique (ΔP) | Du compartiment à haute pression vers celui à basse pression |
Le débit osmotique s’exprime par :
QD = R × T × LH × S × (Cosm1 − Cosm2)
L’eau diffuse du compartiment 2 (faible osmolalité) vers le compartiment 1 (haute osmolalité) pour tendre à l’égalisation des concentrations.
Dans le cas général, osmose et filtration se produisent simultanément. Si les deux vont en sens opposé, on parle d’ultrafiltration (le flux net est la différence entre les deux).
3. Osmolalité efficace et régulation de l’hydratation cellulaire
La membrane cellulaire est sélective : elle est perméable à l’eau et à l’urée, mais peu perméable aux ions et imperméable aux macromolécules. Les transferts d’eau entre milieu extracellulaire et intracellulaire dépendent donc des osmoles efficaces, c’est-à-dire des solutés qui ne traversent pas librement la membrane.
Osmolalité efficace = osmolalité totale − osmolalité de l’urée
Valeurs normales :
Osmolalité totale ≈ 310 mOsm/kg d’eau
Osmolalité de l’urée ≈ 5 mOsm/kg d’eau
Osmolalité efficace ≈ 305 mOsm/kg d’eau
L’urée diffuse librement à travers les membranes cellulaires (via des canaux perméants à l’urée). Elle s’équilibre donc rapidement de part et d’autre : son osmolalité efficace est nulle. Elle n’exerce pas de pression osmotique et n’est pas comptabilisée dans l’osmolalité efficace. Le glucose, en revanche, possède une certaine osmolalité efficace car il est métabolisé en osmolytes intracellulaires (ATP, glycogène) après son entrée dans la cellule.
L’osmolalité efficace est la variable régulée par l’organisme. À l’état d’équilibre :
Osmolalité efficace extracellulaire = Osmolalité efficace intracellulaire
Quand l’osmolalité efficace extracellulaire varie, des transferts d’eau se produisent immédiatement :
| Situation | Mouvement d’eau | Conséquence cellulaire |
|---|---|---|
| Apport d’osmoles sans eau (ex. ingestion de sel) | Eau sort des cellules → extracellulaire | Déshydratation intracellulaire |
| Apport d’eau sans osmoles (ex. potomanie) | Eau entre dans les cellules | Hyperhydratation intracellulaire |
Lors d’un apport d’osmoles sans eau, l’osmolalité efficace extracellulaire augmente, l’eau quitte les cellules par osmose, le volume cellulaire diminue (déshydratation). La soif est déclenchée pour compenser. Après l’apport d’eau, le volume intracellulaire revient à la normale en 4-6 heures, tandis que le volume extracellulaire reste augmenté (l’excès de Na+ met 3-5 jours à être excrété par les reins).
Lors d’un apport d’eau sans osmoles, l’osmolalité efficace extracellulaire diminue, l’eau entre dans les cellules (2/3 en intracellulaire, 1/3 en extracellulaire, proportionnellement au contenu en osmoles). L’hyperhydratation cellulaire peut provoquer des troubles neurologiques (lenteur d’idéation, confusion, troubles de l’équilibre).
4. La boucle ADH : osmorécepteurs, sécrétion et aquaporines
Les osmorécepteurs hypothalamiques
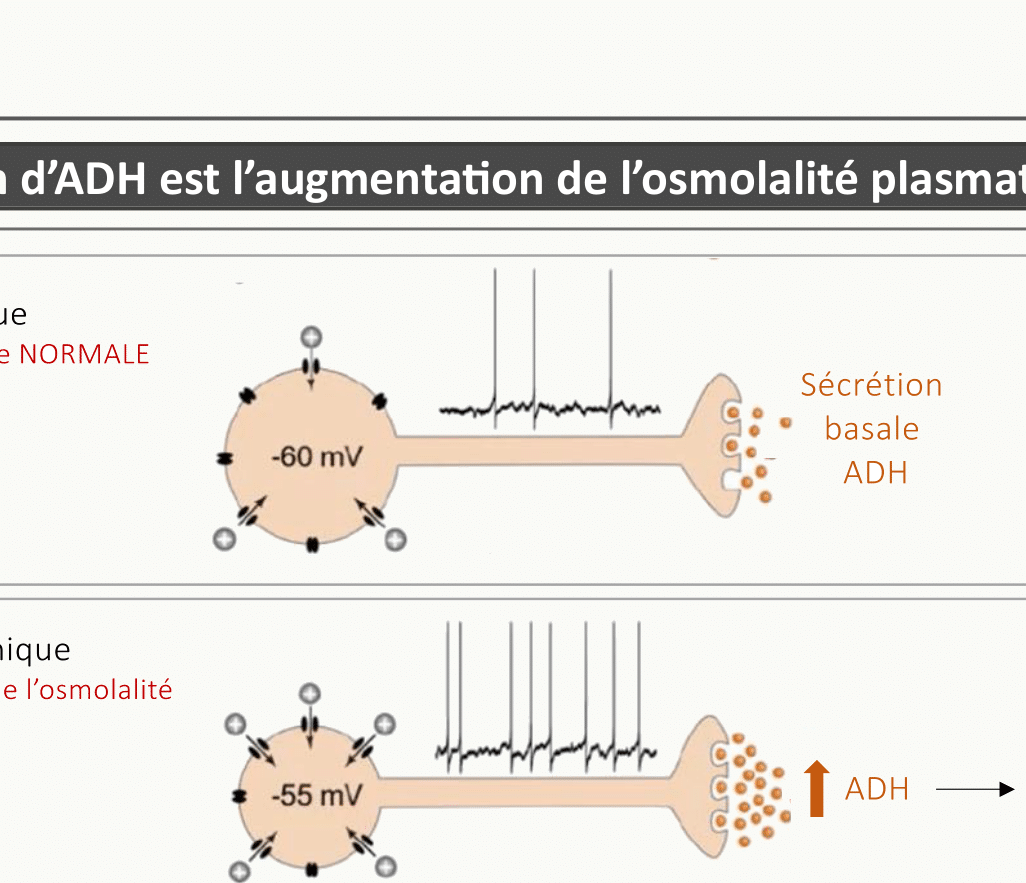
Les osmorécepteurs centraux sont des neurones magnocellulaires situés dans l’hypothalamus, au niveau des noyaux supra-optique (SON) et paraventriculaire (PVN). Ils sont placés en dehors de la barrière hémato-encéphalique, directement au contact du plasma.
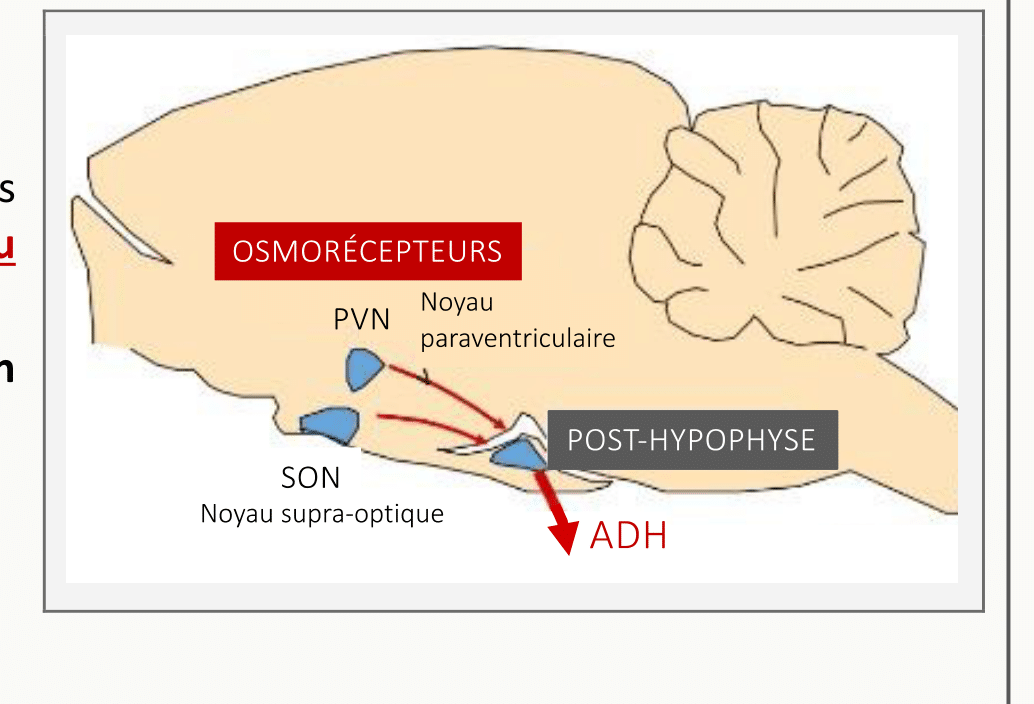
Ces neurones détectent les variations de leur propre volume (via des récepteurs membranaires sensibles à l’étirement) :
- ↑ osmolalité efficace → ↓ volume des osmorécepteurs → ↑ fréquence des potentiels d’action → ↑ libération d’ADH + déclenchement de la soif.
- ↓ osmolalité efficace → ↑ volume des osmorécepteurs → ↓ fréquence → ↓ ADH + inhibition de la soif (dégoût de l’eau).
Sécrétion de l’ADH
L’hormone antidiurétique (ADH, ou vasopressine) est un petit peptide de 8 acides aminés. Elle est synthétisée dans les corps cellulaires des osmorécepteurs, transportée le long des axones de la tige pituitaire, et stockée dans la post-hypophyse. Elle est libérée dans la circulation systémique selon les besoins.
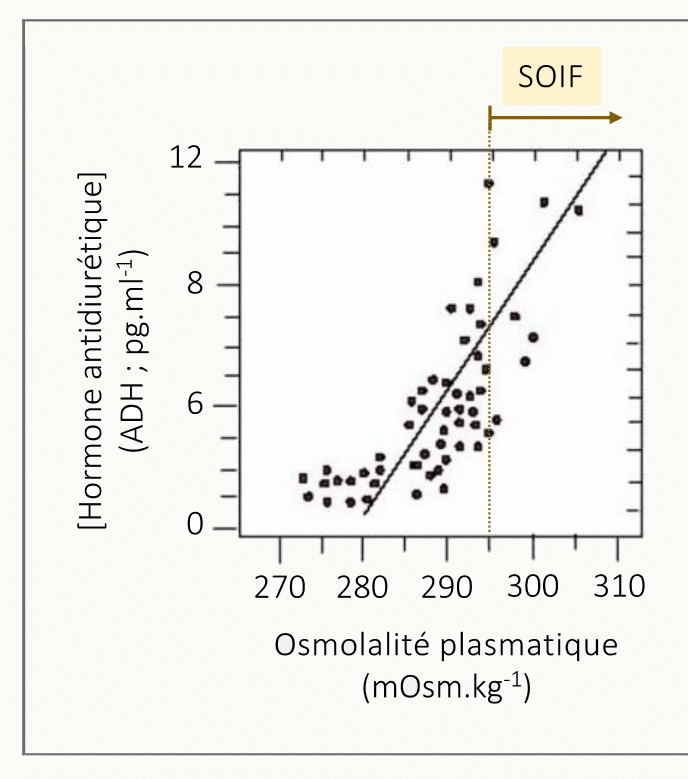
Le seuil osmotique de sécrétion d’ADH est d’environ 280-285 mOsm/kg de plasma. Au-delà de ce seuil, toute augmentation d’osmolalité entraîne une augmentation quasi linéaire de l’ADH plasmatique. Le seuil de la soif est plus élevé : 295-300 mOsm/kg de plasma. Ainsi, l’ADH est sécrétée avant que la soif ne soit ressentie.
Seuil ADH : 280-285 mOsm/kg (en premier).
Seuil soif : 295-300 mOsm/kg (en second).
Le corps ajuste d’abord la réabsorption rénale d’eau (ADH), puis déclenche la soif si nécessaire.
Action de l’ADH : les aquaporines du canal collecteur
L’ADH agit sur les parties distales du néphron (canaux collecteurs cortical et médullaire). Sa demi-vie est courte (~15 minutes), permettant une régulation rapide.
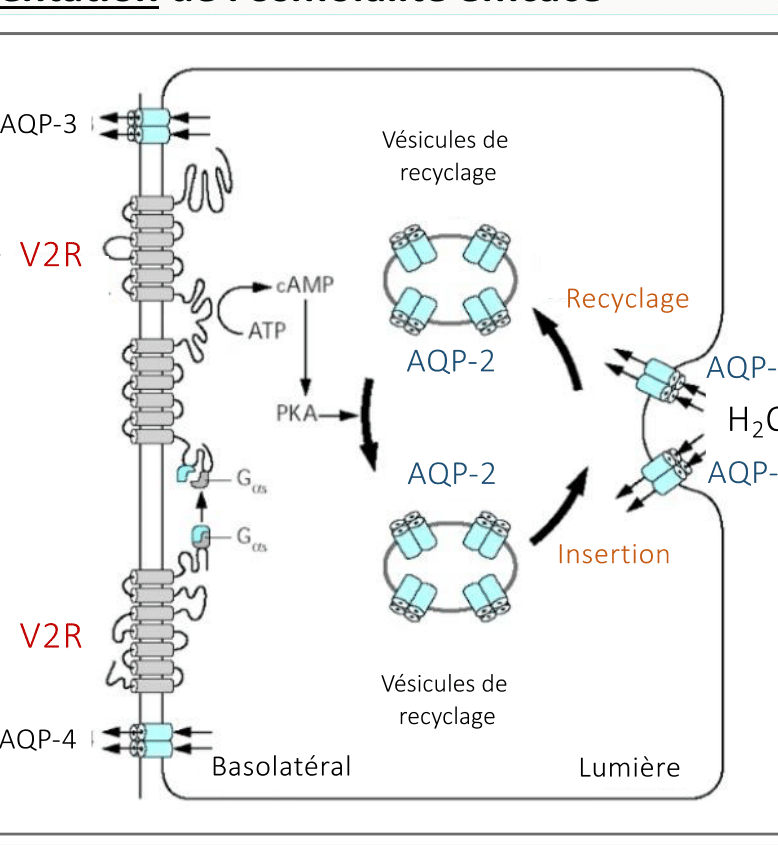
Mécanisme d’action au niveau des cellules principales du canal collecteur :
- L’ADH se fixe au récepteur V2R (pôle basolatéral), couplé à une protéine G stimulatrice (Gs).
- Activation de l’adénylate cyclase → production d’AMPc → activation de la protéine kinase A (PKA).
- La PKA provoque l’insertion de vésicules contenant des canaux à eau aquaporine-2 (AQP-2) dans la membrane apicale (face luminale).
- L’eau traverse la cellule par les AQP-2 (pôle apical) puis sort par les AQP-3 et AQP-4 (pôle basolatéral) vers l’interstitium médullaire.
Conséquences de l’ADH sur les urines :
- ADH élevée → ↑ réabsorption d’eau → urines concentrées (osmolalité urinaire maximale : 1000-1200 mOsm/kg) → antidiurèse.
- ADH basse ou absente → canal collecteur imperméable à l’eau → urines diluées → diurèse aqueuse.
Le diabète insipide central résulte d’un déficit de production d’ADH (lésion hypothalamo-hypophysaire). Le patient produit des volumes urinaires considérables (parfois > 10 L/jour) d’urines très diluées, avec une soif intense compensatrice. Le traitement repose sur l’administration de desmopressine (analogue synthétique de l’ADH). (Source : Société Française d’Endocrinologie.)
🧠 À retenir absolument
- 4 types de transport du soluté : diffusion simple (loi de Fick), diffusion facilitée par canal, par transporteur, transport actif (ATP).
- Osmose : l’eau va du compartiment à faible osmolalité vers celui à haute osmolalité.
- Osmolalité efficace = osmolalité totale − osmolalité de l’urée ≈ 305 mOsm/kg. Variable régulée.
- L’urée est osmotiquement inefficace (diffuse librement) ; le glucose a une osmolalité efficace non nulle.
- Osmorécepteurs hypothalamiques (SON, PVN) → détectent les variations d’osmolalité par variation de leur volume.
- Seuil ADH = 280-285 mOsm/kg ; seuil soif = 295-300 mOsm/kg (l’ADH précède la soif).
- ADH → récepteur V2R → AMPc → PKA → insertion d’AQP-2 (membrane apicale du canal collecteur) → ↑ réabsorption d’eau → urines concentrées.
❓ Questions fréquentes
Pourquoi l’urée n’est-elle pas une osmole efficace ?
Parce qu’elle traverse librement les membranes cellulaires via des canaux perméants. Elle s’équilibre rapidement de part et d’autre : elle ne génère pas de gradient osmotique et n’exerce pas de pression osmotique au niveau des membranes biologiques.
Comment l’ADH concentre-t-elle les urines ?
L’ADH se fixe au récepteur V2R des cellules principales du canal collecteur, déclenchant l’insertion d’aquaporines AQP-2 dans la membrane apicale. L’eau est alors réabsorbée passivement vers l’interstitium médullaire, concentrant les urines jusqu’à 1000-1200 mOsm/kg.
Pourquoi le seuil de sécrétion d’ADH est-il inférieur au seuil de la soif ?
L’organisme tente d’abord de corriger la déshydratation en ajustant la réabsorption rénale d’eau (ADH, action rapide). La soif, qui nécessite un comportement volontaire (boire), n’est déclenchée que si l’ajustement rénal ne suffit pas. C’est un système à deux lignes de défense.
Que se passe-t-il si on ingère une grande quantité d’eau pure ?
L’osmolalité efficace extracellulaire diminue. L’eau entre dans les cellules (2/3 en intracellulaire). Les osmorécepteurs gonflent, inhibent l’ADH : le canal collecteur devient imperméable à l’eau, les urines sont diluées, et l’excès d’eau est éliminé. Si l’excès est massif, des troubles neurologiques peuvent survenir (hyponatrémie de dilution).
Pourquoi le diabète insipide néphrogénique ne répond-il pas à l’ADH exogène ?
Dans le diabète insipide néphrogénique, le rein est résistant à l’ADH : le récepteur V2R ou la voie de signalisation AMPc-PKA est défaillant, empêchant l’insertion des aquaporines AQP-2. Contrairement au diabète insipide central (déficit de production), l’administration de desmopressine est donc inefficace.
🚀 Pour aller plus loin
Contenu pédagogique original — Réussir SVT. L’équipe Réussir SVT.