
Chapitre 2 — Mise en place des axes et induction du mésoderme · Topic 3 : Nature moléculaire des facteurs inducteurs · Leçon 3.4
Voici la pièce maîtresse qui relie tout le chapitre. La voie Wnt/β-caténine explique enfin pourquoi le côté dorsal est différent : la rotation corticale y active cette voie, créant un territoire organisateur unique — le centre de Nieuwkoop. Ce centre sécrète un gradient de Nodal qui régionalise le mésoderme. Axes, déterminants, induction : cette leçon assemble enfin toutes les pièces.
🎯 Objectifs pédagogiques
À la fin de cette leçon, tu sauras :
- décrire la voie Wnt/β-caténine avec et sans Wnt ;
- expliquer comment la rotation active la voie du côté dorsal ;
- interpréter le gain de fonction de la β-caténine (second axe) ;
- définir le centre de Nieuwkoop et son cocktail moléculaire ;
- relier le gradient de Nodal à la régionalisation du mésoderme.
🧭 Plan de la leçon
- La voie Wnt/β-caténine canonique
- La rotation active la voie du côté dorsal
- Gain de fonction : la β-caténine induit un second axe
- Le centre de Nieuwkoop : le cocktail dorso-végétatif
- Le gradient de Nodal régionalise le mésoderme
1. La voie Wnt/β-caténine canonique
La voie Wnt/β-caténine (dite « canonique ») se comprend par contraste, selon que Wnt est absent ou présent. Tout se joue sur le sort d’une protéine : la β-caténine.
| Situation | Devenir de la β-caténine |
|---|---|
| Absence de Wnt | La β-caténine est séquestrée par un complexe APC + axine + GSK3. GSK3 la phosphoryle → ubiquitination → dégradation au protéasome. Elle n’entre pas dans le noyau. |
| Présence de Wnt | Wnt se fixe sur son récepteur Frizzled → recrutement de Dishevelled (Dsh) → Dsh inhibe GSK3 → la β-caténine n’est plus dégradée, s’accumule et entre dans le noyau où elle active les gènes cibles (Siamois, Cycline D1, Nodal). |
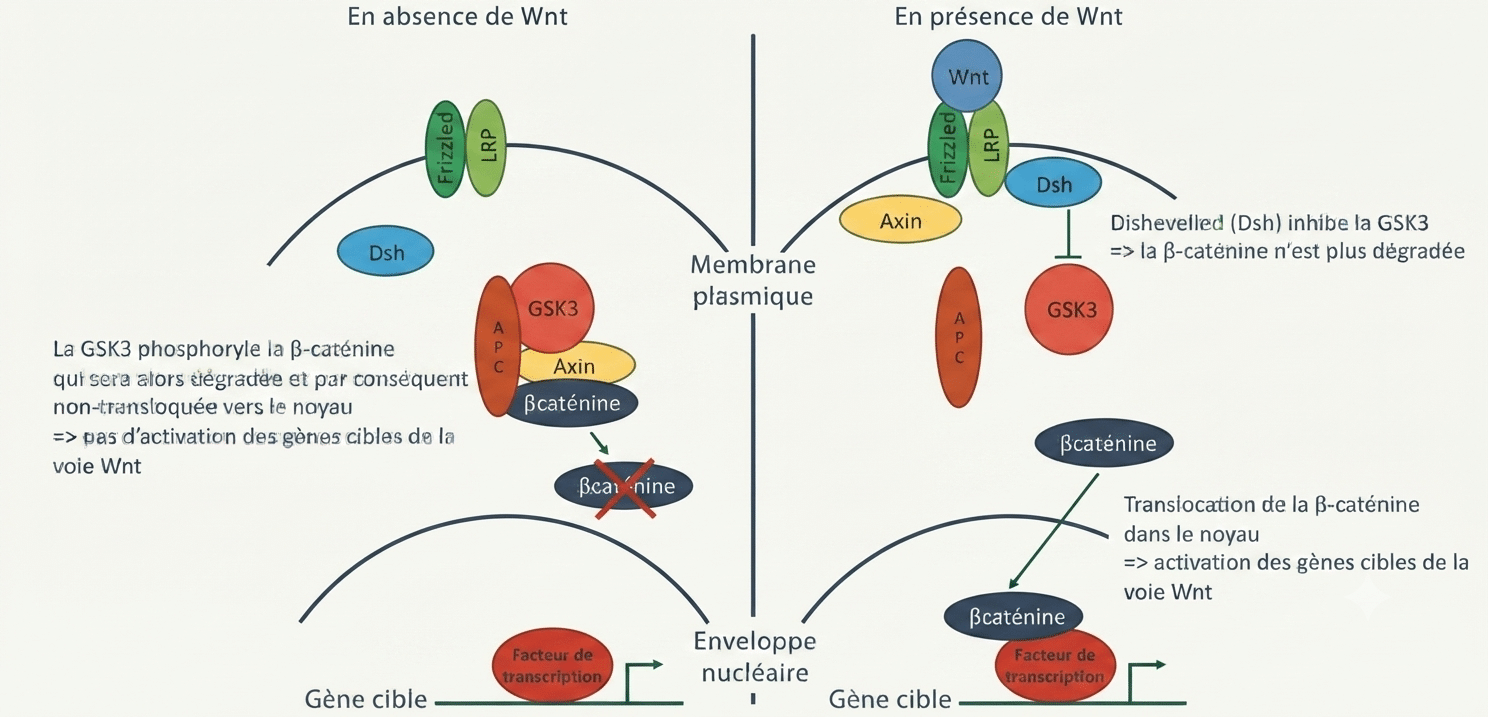
La logique de la voie : GSK3 détruit la β-caténine ; Wnt (via Dsh) inhibe GSK3 et la sauve. Sans Wnt → β-caténine dégradée ; avec Wnt → β-caténine au noyau → gènes activés.
2. La rotation active la voie du côté dorsal
Pourquoi cette voie ne s’active-t-elle que du côté dorsal ? Grâce à la rotation corticale (Topic 1), qui relocalise des déterminants maternels :
- la protéine Dishevelled (Dsh) et l’ARNm Wnt11 sont déplacés vers la future région dorsale ;
- toute la région végétative, elle, contient encore Vg1 et VegT.
Là où Wnt11 et Dsh sont stabilisés (côté dorsal), la voie Wnt/β-caténine s’active : Wnt → Dsh → inhibition de GSK3 → β-caténine nucléaire, et ce uniquement dans les blastomères dorsaux. C’est ainsi que la rotation traduit une asymétrie physique en asymétrie moléculaire.
Tout s’emboîte : la rotation corticale (mécanique, Topic 1) déplace les déterminants ; ces déterminants (Dsh, Wnt11) activent la voie Wnt (moléculaire) ; la β-caténine nucléaire qui en résulte définit le côté dorsal. Le « croissant gris » observé au microscope correspond donc, au niveau moléculaire, à la zone de β-caténine nucléaire.
3. Gain de fonction : la β-caténine induit un second axe
La β-caténine est-elle suffisante pour imposer un dos ? On le teste par gain de fonction : on injecte l’ARNm de β-caténine (ou de Wnt8, même voie) dans la région ventrale d’un embryon normal — une surexpression ectopique.
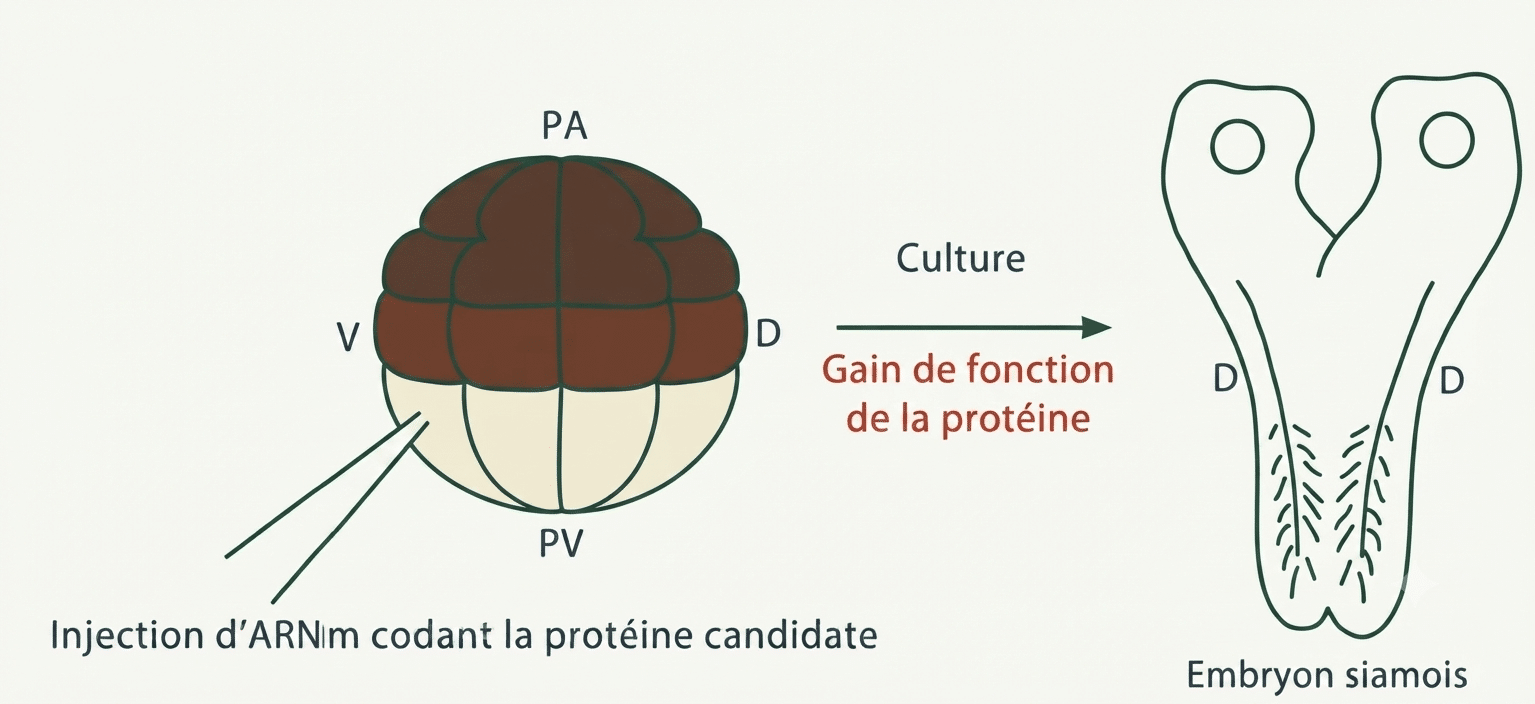
Résultat : apparition d’un second axe (têtard siamois). La β-caténine est donc suffisante pour induire un deuxième axe.
Bon à savoir : la β-caténine est à la fois un déterminant maternel (présent avant la fécondation) et un facteur zygotique (son expression continue ensuite).
Nodal, β-caténine et Siamois sont suffisants pour induire du mésoderme. (Rappel leçon 3.3 : FGF, Activine et β-caténine sont nécessaires.)
4. Le centre de Nieuwkoop : le cocktail dorso-végétatif
À l’intersection de deux territoires se trouve un groupe de cellules très spécial : le centre de Nieuwkoop. Ce sont les blastomères dorso-végétatifs, qui appartiennent à l’endoderme et cumulent :
- Vg1 (TGF-β) ;
- VegT (facteur de transcription) ;
- β-caténine nucléaire (co-facteur de transcription) — apportée par la voie Wnt côté dorsal.
Ce « cocktail » (auxquels s’ajoutent Wnt et Siamois) permet au centre de Nieuwkoop de sécréter fortement la protéine Nodal (un TGF-β), en direction des cellules sus-jacentes (ectodermiques), qui sont alors induites en mésoderme.
Le centre de Nieuwkoop = blastomères dorso-végétatifs (endoderme) exprimant Vg1 + VegT + β-caténine nucléaire. C’est la source du signal inducteur (Nodal) et un véritable centre organisateur.
5. Le gradient de Nodal régionalise le mésoderme
La sécrétion de Nodal n’est pas uniforme : elle décroît à mesure qu’on s’éloigne du centre de Nieuwkoop. Il s’établit donc un gradient de Nodal, qui explique enfin la régionalisation observée chez Dale et Slack.
| Concentration de Nodal | Mésoderme induit |
|---|---|
| Forte (près du centre) | Mésoderme dorsal. |
| Intermédiaire | Mésoderme intermédiaire et latéral. |
| Faible voire nulle (loin du centre) | Mésoderme ventral. |
Le FGF contribue lui aussi à la mise en place du mésoderme. Une molécule sécrétée en gradient et changeant l’identité des cellules selon sa concentration porte un nom : un morphogène — le sujet de la prochaine leçon.
- « Wnt active GSK3 » — Non : Wnt (via Dsh) inhibe GSK3, ce qui protège la β-caténine.
- « Le centre de Nieuwkoop est de l’ectoderme » — Non : ce sont des blastomères dorso-végétatifs (endoderme).
- « Forte dose de Nodal = mésoderme ventral » — Non : forte dose → dorsal ; faible dose → ventral.
🧠 À retenir absolument
- Sans Wnt : GSK3 (avec APC + axine) phosphoryle la β-caténine → protéasome. Avec Wnt : Frizzled → Dsh → inhibition de GSK3 → β-caténine au noyau → gènes (Siamois, Cycline D1, Nodal).
- La rotation corticale relocalise Dsh + Wnt11 côté dorsal → voie Wnt activée → β-caténine nucléaire dans les blastomères dorsaux.
- Gain de fonction β-caténine (ou Wnt8) en ventral → second axe (siamois) : β-caténine suffisante. Nodal, β-caténine, Siamois suffisants ; FGF, Activine, β-caténine nécessaires.
- Centre de Nieuwkoop = blastomères dorso-végétatifs (endoderme) = Vg1 + VegT + β-caténine nucléaire → sécrètent Nodal.
- Gradient de Nodal : forte dose → mésoderme dorsal ; intermédiaire → intermédiaire/latéral ; faible → ventral.
❓ Questions fréquentes
Que devient la β-caténine en l’absence de Wnt ?
Elle est séquestrée par un complexe APC + axine + GSK3. GSK3 la phosphoryle, ce qui entraîne son ubiquitination puis sa dégradation au protéasome. Elle n’atteint donc pas le noyau et n’active aucun gène.
Que se passe-t-il quand Wnt est présent ?
Wnt se fixe sur son récepteur Frizzled et recrute Dishevelled (Dsh). Dsh inhibe GSK3 : la β-caténine n’est plus phosphorylée ni dégradée. Elle s’accumule et entre dans le noyau, où elle agit comme co-facteur de transcription pour activer des gènes cibles comme Siamois, Cycline D1 et Nodal.
Pourquoi la voie Wnt s’active-t-elle seulement du côté dorsal ?
Parce que la rotation corticale relocalise la protéine Dishevelled et l’ARNm Wnt11 vers la future région dorsale. Là où ils sont stabilisés, la voie Wnt/β-caténine s’active et la β-caténine s’accumule dans le noyau des blastomères dorsaux uniquement.
Qu’est-ce que le centre de Nieuwkoop ?
C’est un groupe de blastomères dorso-végétatifs, appartenant à l’endoderme, situés à l’intersection de deux territoires. Ils expriment Vg1, VegT et de la β-caténine nucléaire. Ce cocktail leur permet de sécréter fortement Nodal vers les cellules sus-jacentes, qui sont alors induites en mésoderme.
Comment le gradient de Nodal régionalise-t-il le mésoderme ?
La concentration de Nodal décroît à mesure qu’on s’éloigne du centre de Nieuwkoop. Une forte concentration induit du mésoderme dorsal, une concentration intermédiaire du mésoderme intermédiaire et latéral, et une concentration faible ou nulle du mésoderme ventral. C’est ce gradient qui explique la régionalisation observée par Dale et Slack.
🚀 Pour aller plus loin
Nodal agit en gradient : c’est un morphogène. Formalisons cette notion et le rôle du gène Siamois :
- Leçon 3.5 — La notion de morphogène et le gène Siamois
- Leçon 3.3 — Méthodes : gain et perte de fonction
- Leçon 1.1 — De l’organisation étagée à concentrique et les cellules en bouteille
(Remplace les ancres « # » par les URL réelles de tes leçons Tutor LMS.)
Contenu pédagogique original — Réussir SVT. L’équipe Réussir SVT.