
Chapitre 2 — Mise en place des axes et induction du mésoderme · Topic 3 : Nature moléculaire des facteurs inducteurs · Leçon 3.3
Identifier une molécule candidate, c’est bien ; prouver son rôle, c’est mieux. Pour cela, les biologistes disposent d’une boîte à outils que tu dois maîtriser : visualiser où une molécule est exprimée (hybridation in situ), tester si elle est suffisante (gain de fonction) ou nécessaire (perte de fonction). Cette leçon décrit ces méthodes — des morpholinos aux dominants négatifs — appliquées à l’induction du mésoderme.
🎯 Objectifs pédagogiques
À la fin de cette leçon, tu sauras :
- décrire le principe de l’hybridation in situ ;
- opposer gain (suffisant) et perte (nécessaire) de fonction ;
- interpréter le sauvetage d’embryons irradiés ;
- distinguer morpholinos, antisens et ARN interférents ;
- expliquer la stratégie des dominants négatifs.
🧭 Plan de la leçon
- Visualiser un ARNm : l’hybridation in situ
- Nécessaire ou suffisant ? Deux questions
- Gain de fonction : le sauvetage d’embryons irradiés
- Perte de fonction : bloquer l’ARNm
- Les dominants négatifs
1. Visualiser un ARNm : l’hybridation in situ
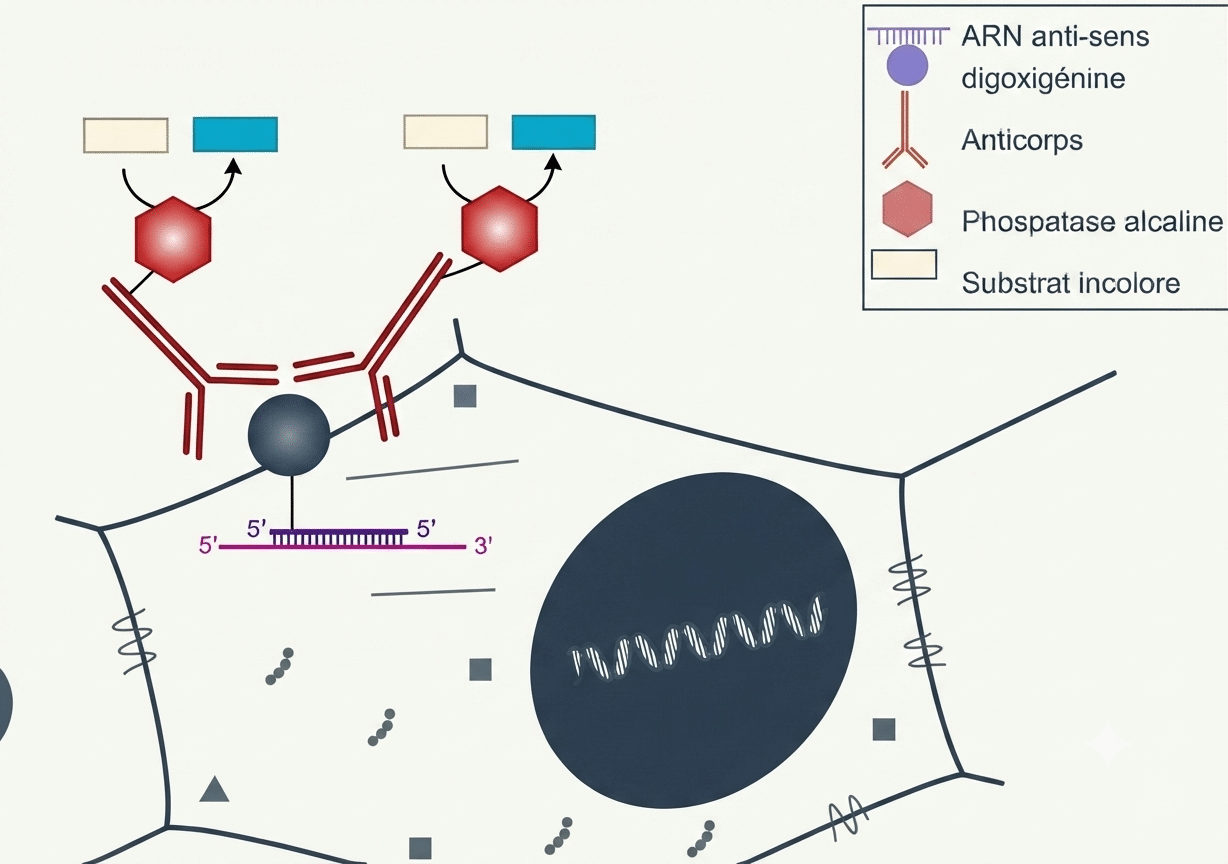
L’hybridation in situ permet de détecter un ARNm et donc de voir quelles cellules expriment un gène.
Principe :
- une sonde (ARN complémentaire de l’ARNm cible) est couplée à la digoxygénine ;
- elle s’hybride sur l’ARNm d’intérêt ;
- la digoxygénine est reconnue par des anticorps couplés à une enzyme (substrat incolore → produit coloré) ou à une molécule fluorescente ;
- les cellules exprimant l’ARNm apparaissent colorées ou fluorescentes.
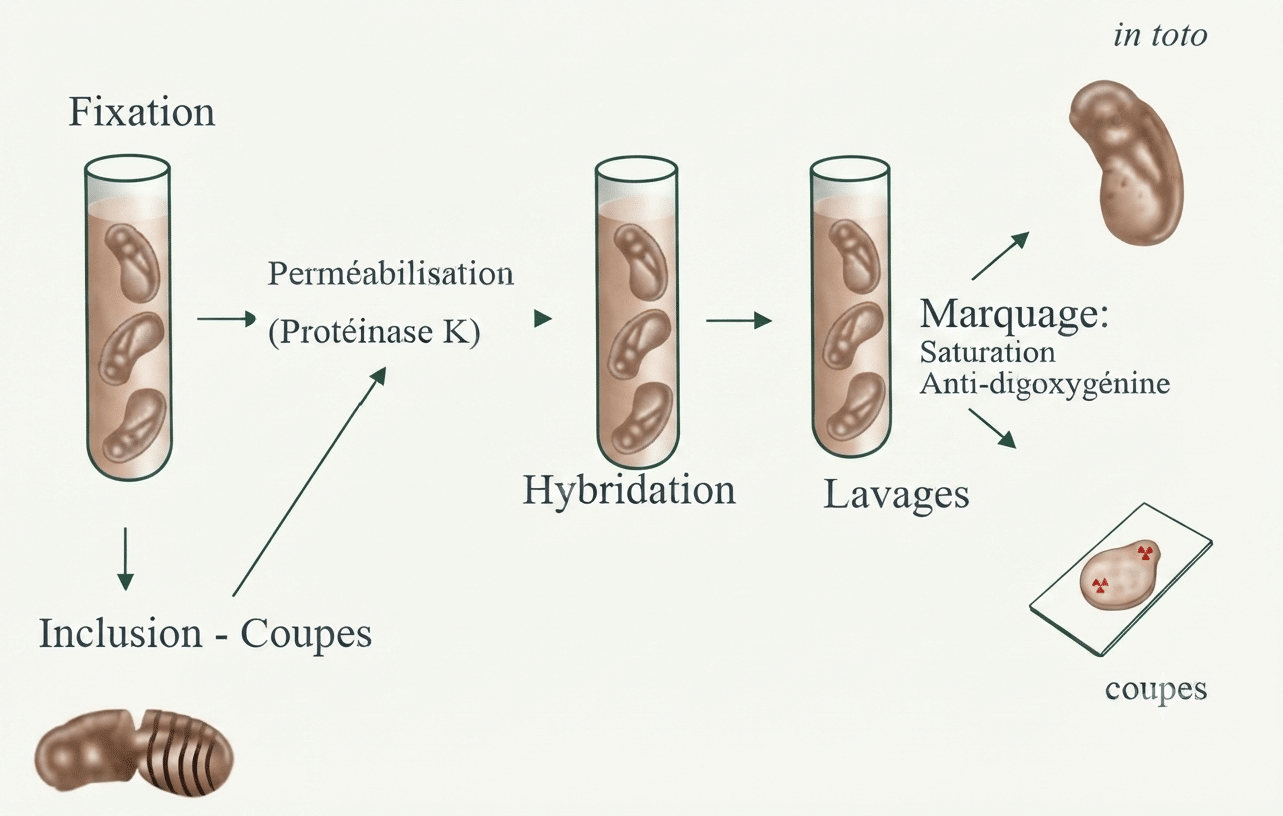
L’hybridation in situ se fait sur des embryons fixés (donc morts). Étapes clés du protocole : perméabilisation à la protéinase K, hybridation, lavages, saturation (protéines de lait), puis révélation des anticorps anti-digoxygénine — sur coupe ou sur embryon entier (in toto).
2. Nécessaire ou suffisant ? Deux questions
Pour démontrer le rôle d’une molécule, on pose deux questions complémentaires, auxquelles répondent deux types d’expériences :
| Approche | Question | Principe |
|---|---|---|
| Gain de fonction | La molécule est-elle suffisante ? | On ajoute la molécule (ou son ARNm) et on regarde si l’effet apparaît. |
| Perte de fonction | La molécule est-elle nécessaire ? | On supprime la molécule et on regarde si l’effet disparaît. |
Les expériences de perte de fonction testent si une molécule est nécessaire ; les expériences de gain de fonction testent si elle est suffisante. C’est l’une des distinctions les plus fréquemment évaluées.
3. Gain de fonction : le sauvetage d’embryons irradiés
Comment tester in vivo si une molécule est suffisante pour induire le mésoderme dorsal ? Par une expérience de restauration (sauvetage).
| Étape | Description |
|---|---|
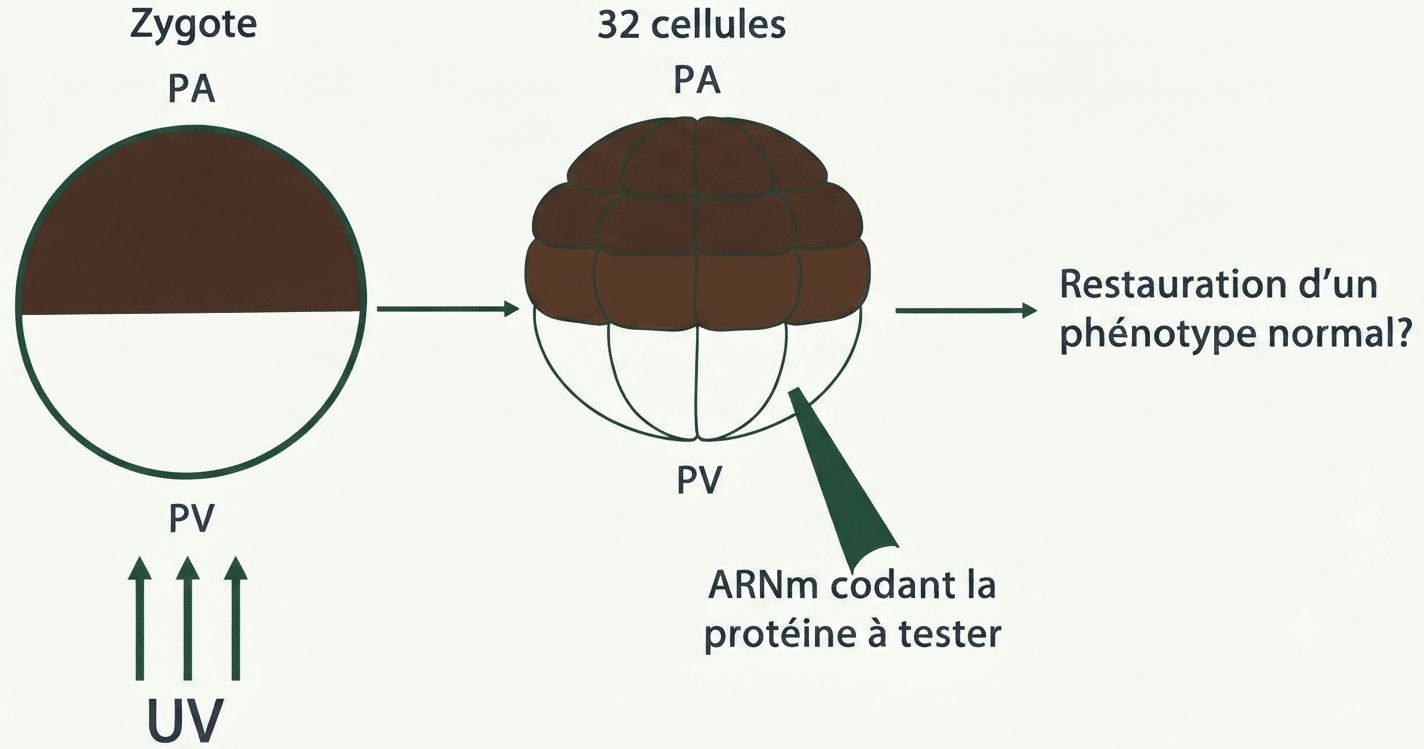
| Point de départ | Irradiation aux UV de l’hémisphère végétatif, 30 min après la fécondation (avant la 1ʳᵉ division) : cela bloque la rotation corticale, donc l’induction du mésoderme dorsal. |
| Sauvetage | Injection, dans la région dorsale d’embryons irradiés (au stade 32 cellules, dans 2 blastomères végétatifs adjacents), de l’ARNm de la molécule candidate. |
| Lecture | Si la protéine est un inducteur dorsal, elle restaure (partiellement ou totalement) les structures dorsales. |
Vg1 seul ne restaure pas l’axe dorso-ventral. Activine seule le restaure partiellement. Aucune molécule isolée ne suffit totalement : l’induction repose sur une combinaison de facteurs.
4. Perte de fonction : bloquer l’ARNm
Pour tester la nécessité d’une molécule, on empêche la production de la protéine en s’attaquant à son ARNm. Trois techniques :
| Technique | Mécanisme |
|---|---|
| Morpholinos | Empêchent la traduction par encombrement stérique (les ribosomes ne s’accrochent plus). Pas de dégradation de l’ARNm. |
| Oligonucléotides antisens | Forment un hybride ARN-ARN reconnu et dégradé par la cellule. |
| ARN interférents | Même principe, mais le complexe est dégradé par le système DICER. |
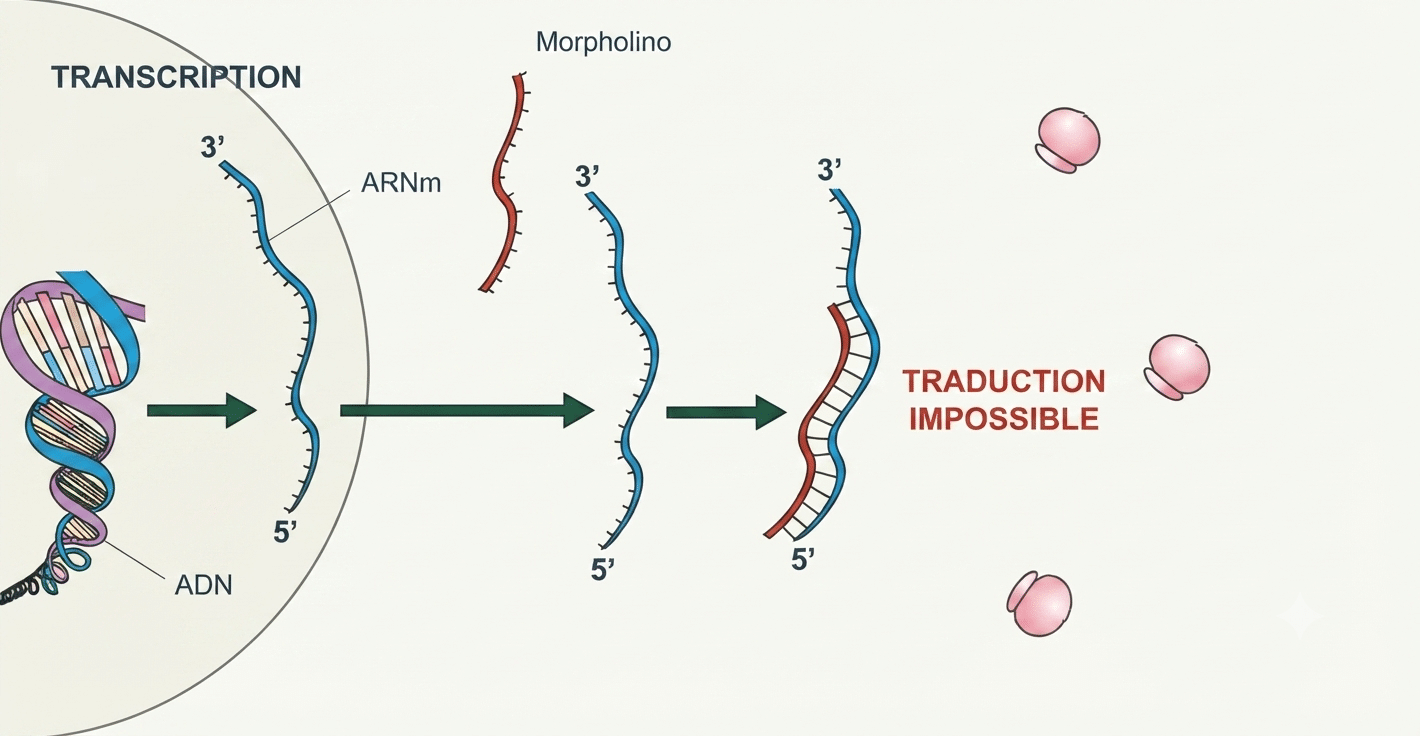
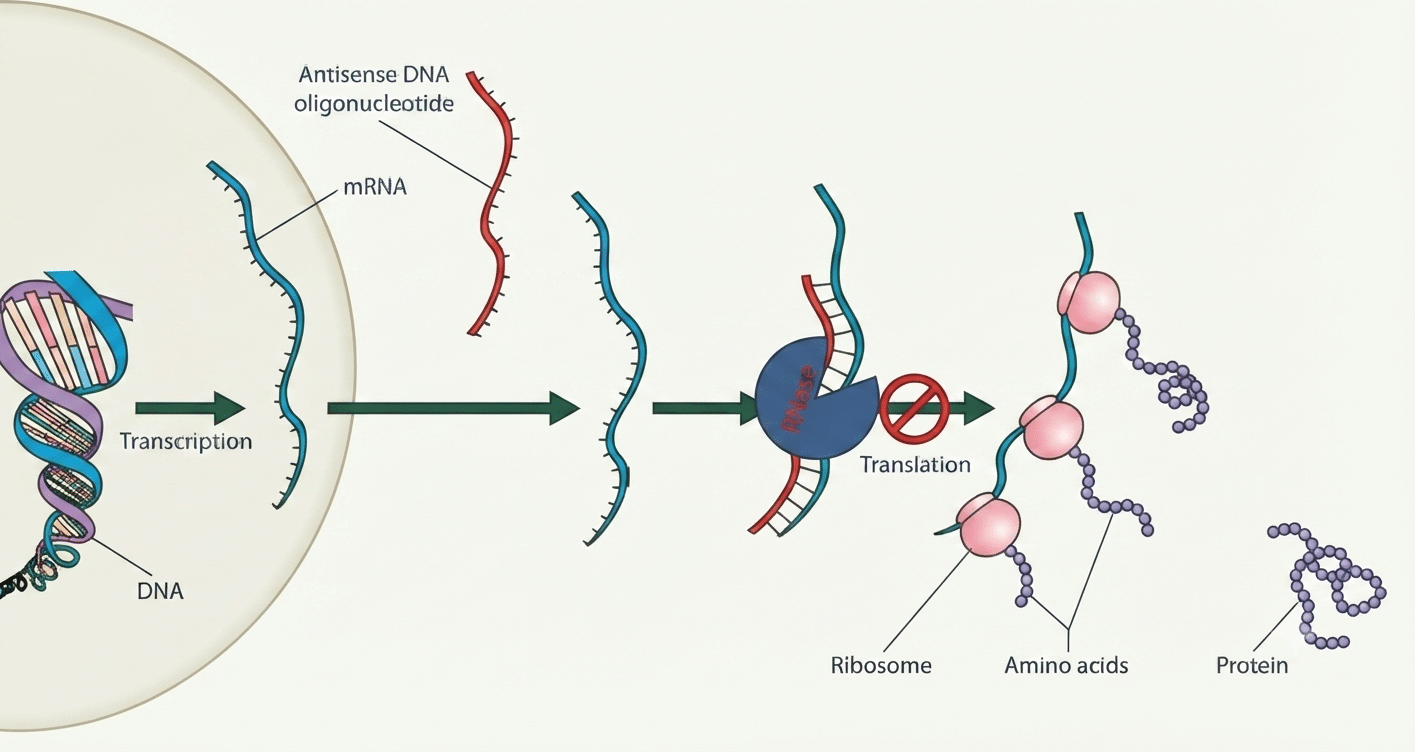
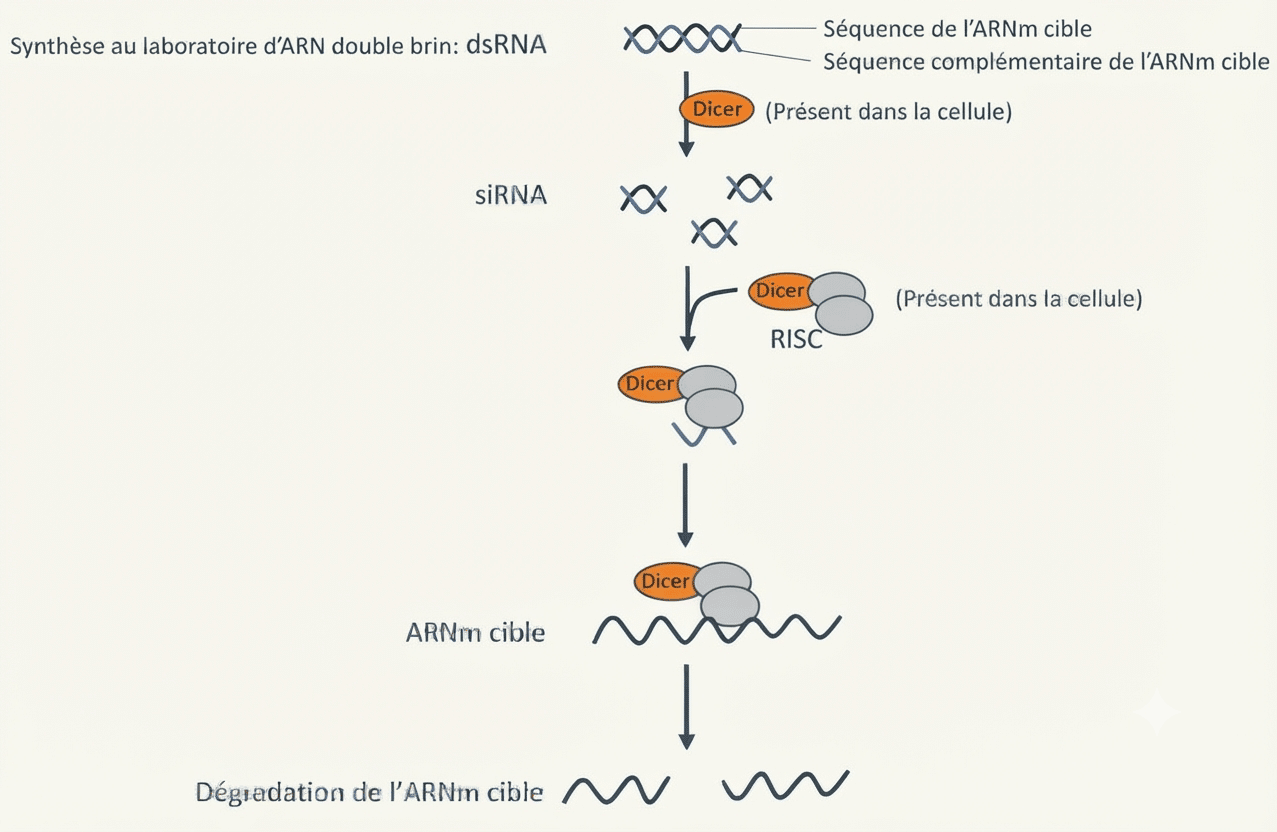
Résultat attendu : la perte de fonction d’un inducteur du mésoderme dorsal donne des embryons ventralisés.
La grande distinction entre ces outils : le morpholino bloque l’ARNm sans le détruire (simple obstacle physique), alors que les antisens et les ARN interférents le font dégrader. Même but — pas de protéine — mais deux logiques : empêcher la lecture, ou détruire le message.
5. Les dominants négatifs
Autre stratégie de perte de fonction : les dominants négatifs. Le but est d’inhiber une protéine en surexprimant une forme mutante non fonctionnelle. Le récepteur normal reste présent, mais il est dépassé par l’abondance de récepteurs tronqués inactifs.
Exemple : on injecte au stade 2 cellules l’ARNm d’un récepteur FGF tronqué (sans domaine intracellulaire). Malgré la présence de FGF, aucun signal n’est transmis.
Observation : la larve présente un développement anormal — absence de queue (or la queue est riche en muscles, dérivés du mésoderme intermédiaire/dorso-latéral).
Bilan : les FGF sont nécessaires à l’induction des mésodermes intermédiaire et ventral.
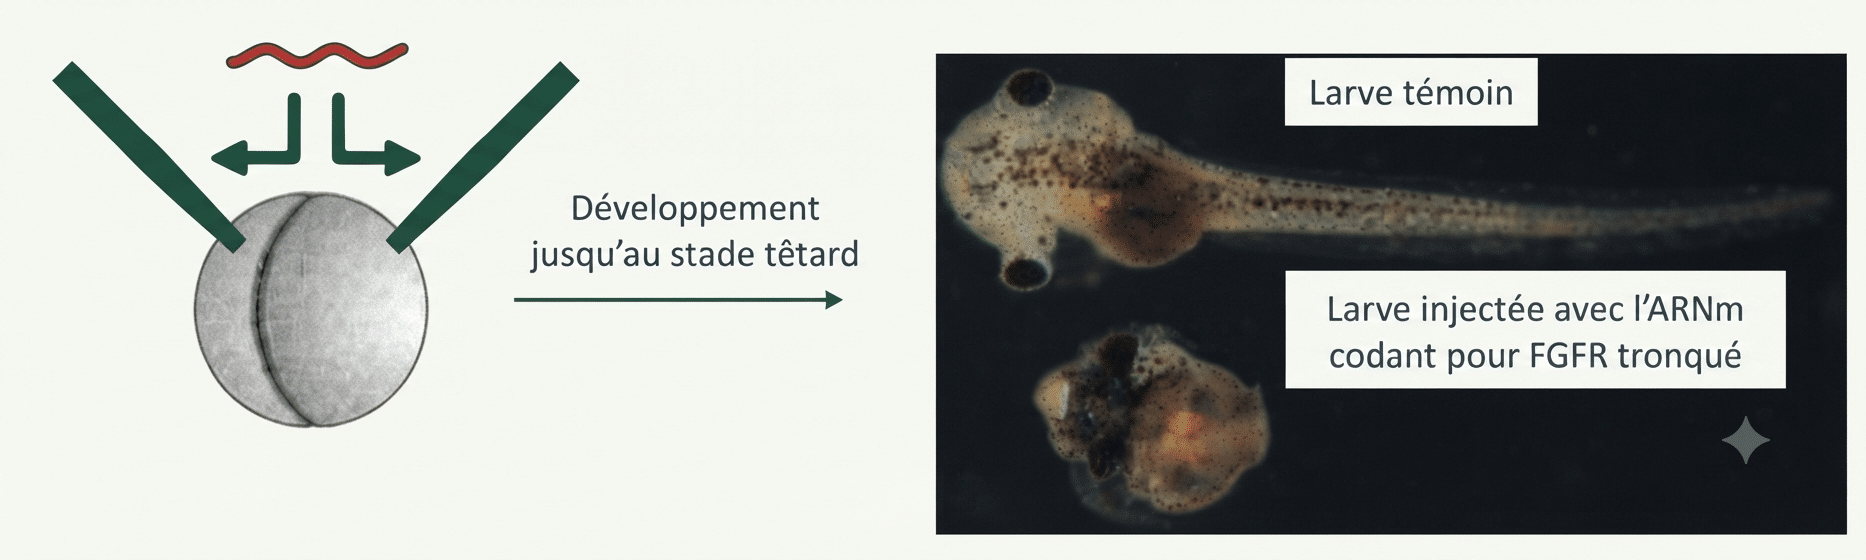
FGF, Activine et β-caténine sont nécessaires à l’induction du mésoderme. (La voie Wnt/β-caténine fait l’objet de la leçon 3.4.)
- « Gain de fonction = nécessaire » — Non : gain = suffisant ; perte = nécessaire.
- « Le morpholino dégrade l’ARNm » — Non : il le bloque par encombrement stérique ; ce sont les antisens/ARNi qui le dégradent.
- « Un dominant négatif supprime le gène » — Non : il surexprime une forme mutante qui « noie » la protéine fonctionnelle.
🧠 À retenir absolument
- Hybridation in situ : sonde ARN à digoxygénine + anticorps (enzyme coloré/fluorescence) → visualise l’ARNm sur embryon fixé (coupe ou in toto).
- Perte de fonction = nécessaire ; gain de fonction = suffisant.
- Sauvetage d’embryons irradiés UV : Vg1 seul ne restaure pas ; Activine seule restaure partiellement.
- Perte de fonction par morpholinos (blocage stérique, pas de dégradation), antisens et ARN interférents (dégradation, DICER pour les ARNi) → embryons ventralisés.
- Dominant négatif (récepteur FGF tronqué) → larve sans queue → FGF nécessaire aux mésodermes intermédiaire/ventral. Bilan : FGF, Activine, β-caténine nécessaires.
❓ Questions fréquentes
À quoi sert l’hybridation in situ ?
À détecter un ARNm dans un tissu, donc à savoir quelles cellules expriment un gène. Une sonde ARN complémentaire, couplée à la digoxygénine, s’hybride sur l’ARNm cible ; un anticorps anti-digoxygénine, couplé à une enzyme colorée ou à un fluorochrome, révèle les cellules concernées. La technique se pratique sur embryons fixés, sur coupe ou in toto.
Quelle est la différence entre gain et perte de fonction ?
La perte de fonction teste si une molécule est nécessaire : on la supprime et on regarde si l’effet disparaît. Le gain de fonction teste si elle est suffisante : on l’ajoute et on regarde si l’effet apparaît. Les deux approches sont complémentaires pour démontrer le rôle d’une molécule.
Que montrent les expériences de sauvetage d’embryons irradiés ?
On irradie l’hémisphère végétatif aux UV pour bloquer la rotation corticale et l’induction du mésoderme dorsal, puis on injecte l’ARNm d’une molécule candidate. Vg1 seul ne restaure pas l’axe dorso-ventral ; Activine seule le restaure partiellement. Aucune molécule isolée ne suffit totalement : l’induction repose sur une combinaison de facteurs.
Comment fonctionnent morpholinos, antisens et ARN interférents ?
Le morpholino empêche la traduction par encombrement stérique, sans dégrader l’ARNm. L’oligonucléotide antisens forme un hybride ARN-ARN dégradé par la cellule. L’ARN interférent agit de façon similaire, mais le complexe est dégradé par le système DICER. Dans les trois cas, la protéine n’est pas produite.
Qu’est-ce qu’un dominant négatif ?
C’est une stratégie de perte de fonction où l’on surexprime une forme mutante non fonctionnelle d’une protéine. Le récepteur normal reste présent mais il est dépassé par les récepteurs tronqués inactifs. Exemple : un récepteur FGF sans domaine intracellulaire bloque la transduction du signal ; la larve obtenue n’a pas de queue, ce qui montre que le FGF est nécessaire à l’induction des mésodermes intermédiaire et ventral.
🚀 Pour aller plus loin
Le bilan désigne aussi la β-caténine. Voyons sa voie et le territoire qui orchestre tout :
- Leçon 3.4 — La voie Wnt/β-caténine et le centre de Nieuwkoop
- Leçon 3.5 — La notion de morphogène et le gène Siamois
- Leçon 3.2 — Les voies de signalisation FGF et TGF-β
(Remplace les ancres « # » par les URL réelles de tes leçons Tutor LMS.)
Contenu pédagogique original — Réussir SVT. L’équipe Réussir SVT.