
Chapitre 2 — Mise en place des axes et induction du mésoderme · Topic 2 : Segmentation et induction du mésoderme · Leçon 2.1
Les axes sont posés : l’embryon peut commencer à se diviser. C’est la segmentation (ou clivage). Mais attention : chez le xénope, ces premières divisions sont particulières — totales mais inégales, d’abord synchrones et silencieuses sur le plan génétique. Cette leçon suit l’embryon du zygote à la blastula, en passant par la mise en place de la matrice, des jonctions, et le moment clé où le génome de l’embryon s’allume.
🎯 Objectifs pédagogiques
À la fin de cette leçon, tu sauras :
- distinguer segmentation holoblastique et méroblastique ;
- décrire le clivage inégal du xénope (micromères, macromères) ;
- définir morula, blastocèle et blastula ;
- citer les constituants de la matrice du toit du blastocèle ;
- expliquer la transition blastuléenne et l’activation du génome zygotique.
🧭 Plan de la leçon
- Segmentation : définition et deux grands types
- Le clivage du xénope : holoblastique et inégal
- Le toit du blastocèle : une matrice extracellulaire
- Jonctions et molécules d’adhérence
- Divisions synchrones puis asynchrones : la transition blastuléenne
1. Segmentation : définition et deux grands types
La segmentation (= clivage = division) correspond aux premières divisions du zygote. On distingue deux grands types selon que l’œuf se divise entièrement ou non :
| Type | Définition | Exemple |
|---|---|---|
| Holoblastique | Division totale : la totalité de l’œuf se divise. | Le xénope. |
| Méroblastique | Division incomplète : l’œuf ne se divise que partiellement. | Le poulet. |
La segmentation du xénope est holoblastique (totale). Celle du poulet, riche en réserves, est méroblastique (partielle). La quantité et la répartition du vitellus conditionnent le type de clivage.
2. Le clivage du xénope : holoblastique et inégal
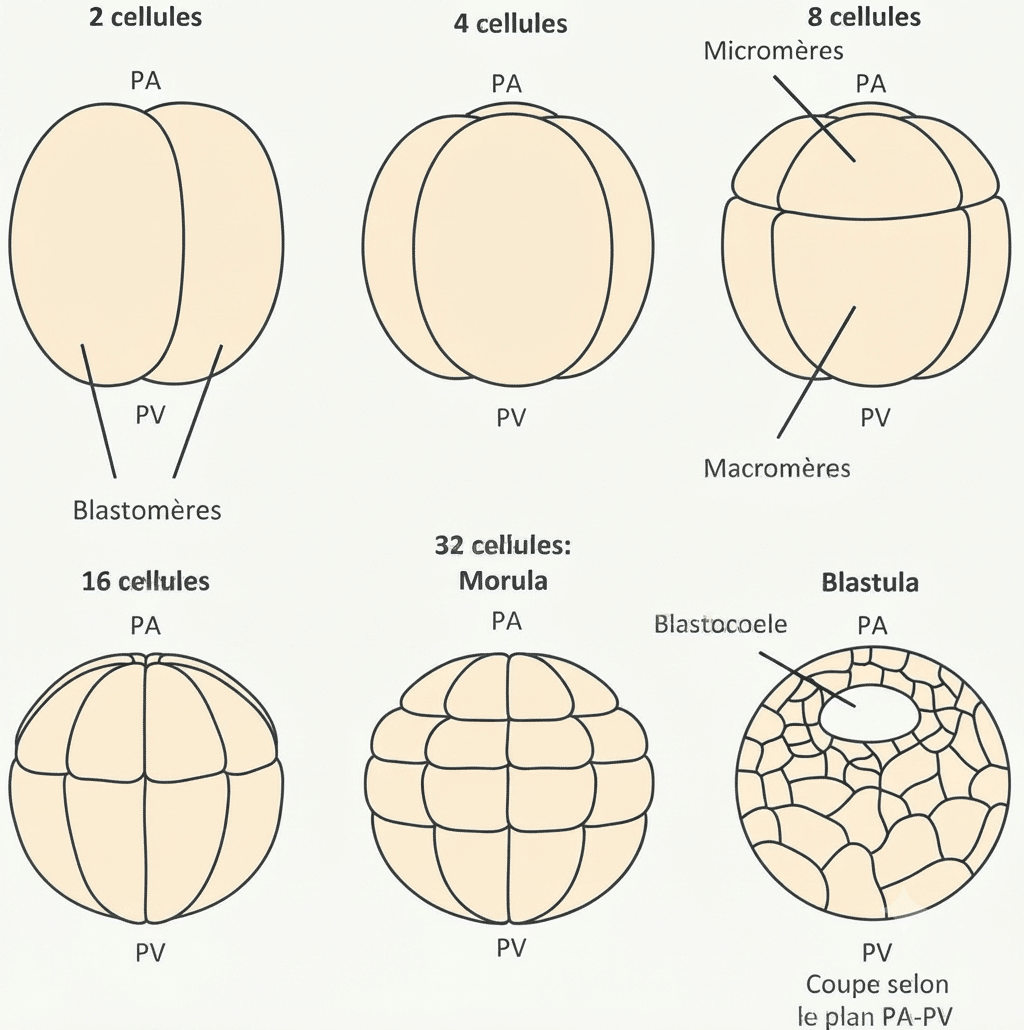
Les deux premières divisions sont égales : 1 → 2 → 4 blastomères de même taille.
Dès la 3ᵉ division, le sillon passe plus haut, dans la région animale : on obtient 8 blastomères inégaux — 4 micromères (petits, pôle animal) et 4 macromères (gros, pôle végétatif, chargés de réserves).
La suite :
- au stade 32 cellules, l’embryon s’appelle la morula (il ressemble à une petite mûre) ;
- une cavité, le blastocèle, apparaît ensuite (autour de 32 cellules) : c’est le stade blastula.
Souviens-toi du Topic 1 : l’œuf est hétérolécithe (réserves concentrées au pôle végétatif). Ces réserves ralentissent la division au pôle végétatif : les blastomères y sont donc plus gros (macromères) qu’au pôle animal (micromères). La polarité de l’œuf explique l’inégalité du clivage.
3. Le toit du blastocèle : une matrice extracellulaire
Les micromères du pôle animal en contact avec le blastocèle (le toit du blastocèle) synthétisent une matrice extracellulaire (MEC), très importante pour la suite du développement (notamment la migration cellulaire de la gastrulation).
Cette MEC est composée principalement de deux glycoprotéines : la fibronectine et la laminine.
| Glycoprotéine | Structure et interactions |
|---|---|
| Fibronectine | Deux sous-unités reliées par des ponts disulfures (extrémité C-terminale). Domaines d’interaction avec d’autres protéines de la MEC (héparine, fibrine, collagène) ou avec les cellules via les peptides RGDS. |
| Laminine | Trois chaînes polypeptidiques en triple hélice. Sites de liaison au collagène et aux cellules, via les intégrines β1 ou β3. |
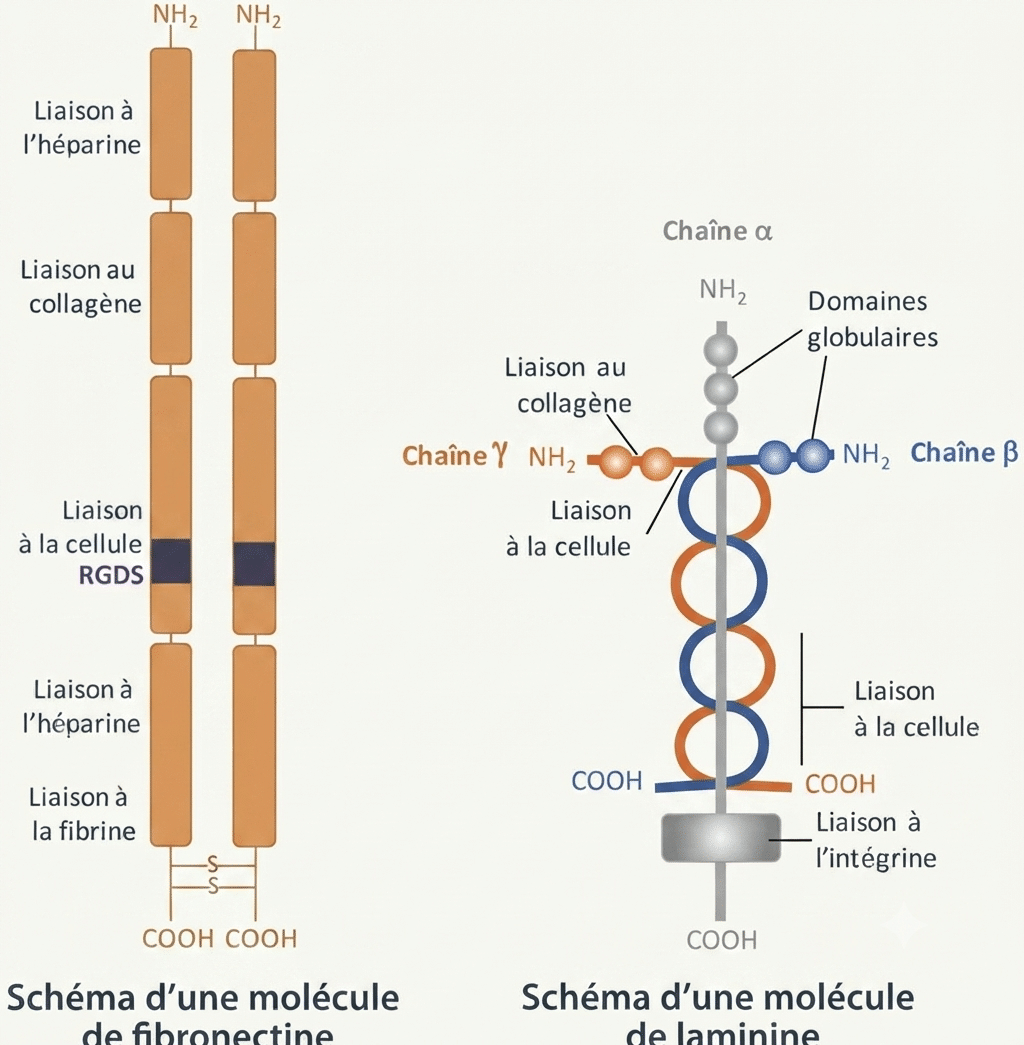
Les cellules reconnaissent la MEC grâce aux intégrines. Point important : en début de clivage, ces glycoprotéines sont produites à partir d’ARNm maternels ; leur production se poursuit ensuite grâce au génome zygotique, activé au bout de 12 divisions.
4. Jonctions et molécules d’adhérence
Entre les micromères du pôle animal (la calotte animale) se mettent en place des jonctions cellulaires :
- jonctions serrées : maintiennent l’étanchéité et la cohésion entre cellules ;
- jonctions gap : permettent la communication par passage de molécules.
Les cellules portent aussi des molécules d’adhérence de deux familles :
- les cadhérines : adhérence cellule-cellule (entre micromères, entre macromères) ;
- les intégrines : adhérence cellule-matrice (entre micromères et MEC).
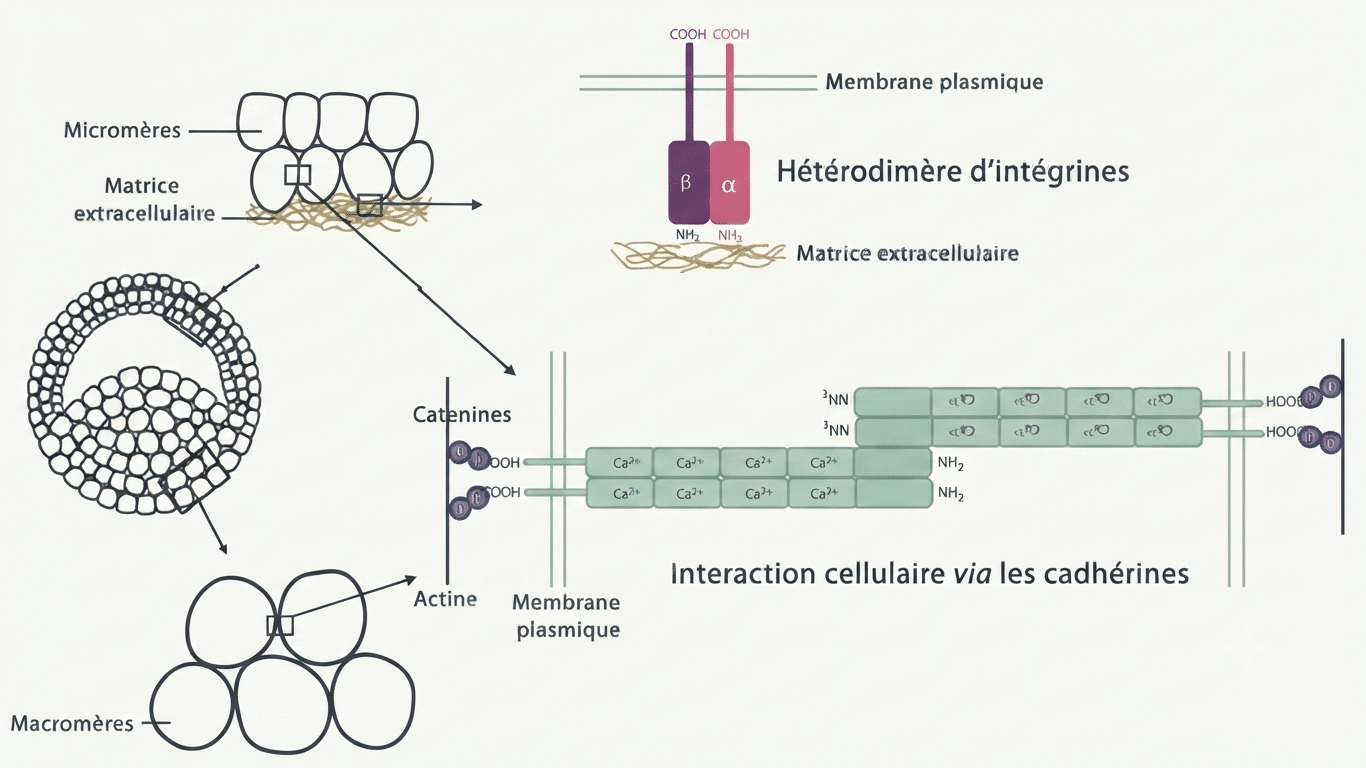
Cadhérines = cellule-cellule (les deux commencent par « c »). Intégrines = cellule-matrice (elles « intègrent » la cellule à la MEC). À ne pas confondre au concours.
5. Divisions synchrones puis asynchrones : la transition blastuléenne
Le rythme des divisions change radicalement au cours du clivage, en lien avec l’activation du génome de l’embryon.
| Phase | Caractéristiques |
|---|---|
| 12 premières divisions | Génome zygotique non exprimé. Divisions synchrones et rapides (10-12 cycles sans G1 ni G2, alternance S/M). L’embryon garde la taille de l’œuf ; les cellules deviennent de plus en plus petites. Protéines issues des ARNm maternels (déterminants). |
| Transition blastuléenne (≈ 2¹⁰-2¹² cellules) | Reprise de la transcription : activation du génome zygotique. Les divisions ralentissent et deviennent asynchrones (allongement de G2, apparition de G1). |
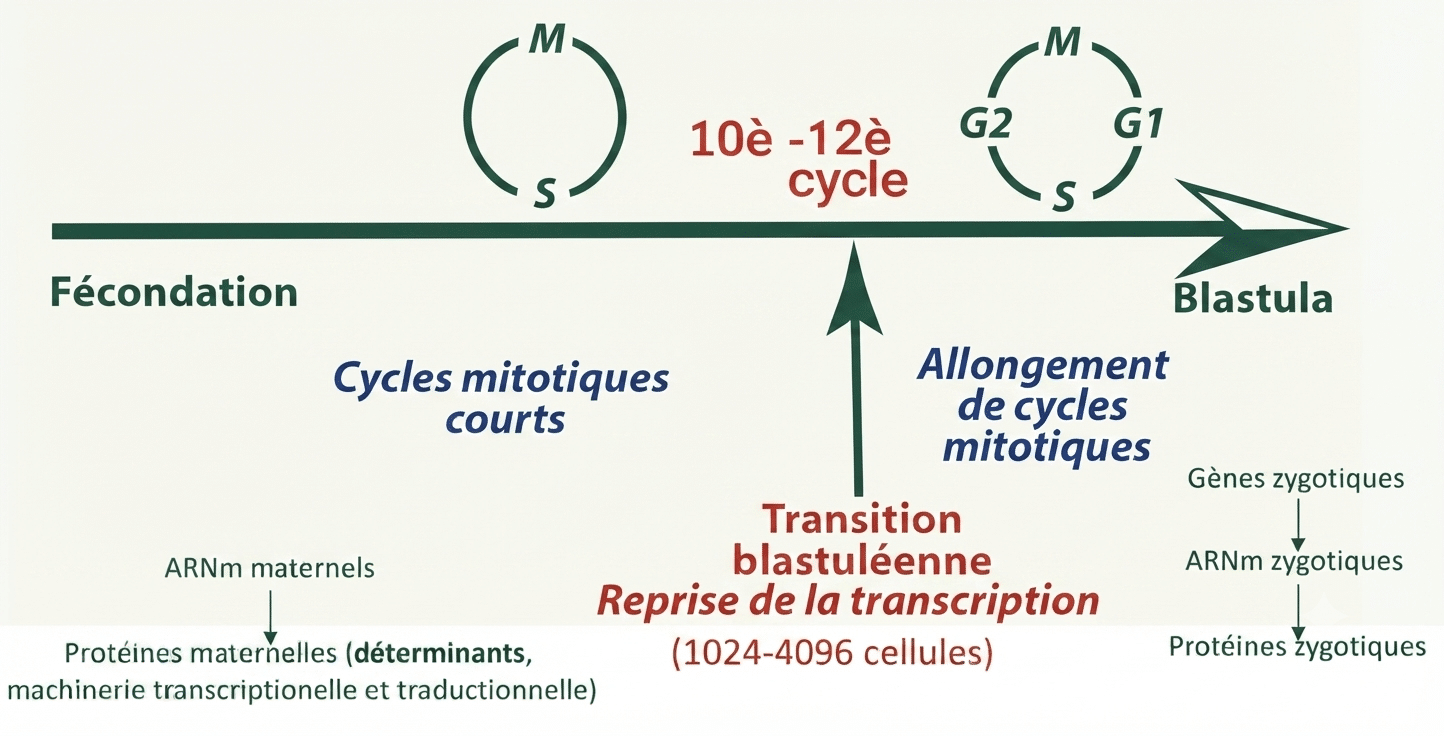
Pendant les 12 premières divisions, l’embryon de xénope fonctionne entièrement sur les réserves maternelles (ARNm et protéines stockés par la mère). C’est seulement à la transition blastuléenne qu’il « prend la main » sur son propre génome. Avant cela, le développement est piloté par la mère : c’est pourquoi les déterminants maternels sont si décisifs pour les axes.
- « Micromères au pôle végétatif » — Non : micromères (petits) au pôle animal, macromères (gros) au pôle végétatif.
- « Le génome de l’embryon est actif dès la fécondation » — Non : il est silencieux pendant ~12 divisions, jusqu’à la transition blastuléenne.
- « Cadhérines = cellule-matrice » — Non : cadhérines = cellule-cellule ; intégrines = cellule-matrice.
🧠 À retenir absolument
- Segmentation holoblastique (totale, xénope) vs méroblastique (partielle, poulet).
- Clivage du xénope inégal : 2 premières divisions égales, puis dès la 3ᵉ → micromères (animal) + macromères (végétatif). 32 cellules = morula → blastula (cavité = blastocèle).
- Toit du blastocèle tapissé d’une MEC : fibronectine (RGDS) + laminine ; reconnaissance par les intégrines.
- Jonctions serrées (étanchéité) et gap (communication) ; adhérence par cadhérines (cellule-cellule) et intégrines (cellule-matrice).
- Transition blastuléenne (≈ 12 divisions) : passage de divisions synchrones (ARNm maternels, sans G1/G2) à asynchrones avec activation du génome zygotique.
❓ Questions fréquentes
Quelle est la différence entre segmentation holoblastique et méroblastique ?
Dans la segmentation holoblastique, la totalité de l’œuf se divise : c’est le cas du xénope. Dans la segmentation méroblastique, la division est incomplète car l’œuf est trop riche en réserves : c’est le cas du poulet. Le type de clivage dépend de la quantité et de la répartition du vitellus.
Pourquoi le clivage du xénope est-il inégal ?
Parce que l’œuf est hétérolécithe : les réserves sont concentrées au pôle végétatif et y ralentissent la division. Dès la 3ᵉ division, le sillon passe plus haut, dans la région animale : on obtient de petits blastomères au pôle animal (micromères) et de gros blastomères au pôle végétatif (macromères).
Qu’est-ce que la blastula et le blastocèle ?
Au stade 32 cellules, l’embryon (la morula) voit apparaître une cavité interne : le blastocèle. L’embryon prend alors le nom de blastula. Le toit du blastocèle, formé par les micromères du pôle animal, est tapissé d’une matrice extracellulaire importante pour la suite du développement.
Quelles molécules composent la matrice du toit du blastocèle ?
Principalement deux glycoprotéines : la fibronectine (deux sous-unités liées par des ponts disulfures, interagissant avec les cellules via les peptides RGDS) et la laminine (trois chaînes en triple hélice, liant le collagène et les cellules via les intégrines β1 ou β3). Les cellules reconnaissent cette matrice grâce aux intégrines.
Qu’est-ce que la transition blastuléenne ?
C’est le moment, après environ 12 divisions, où le génome de l’embryon s’active. Avant, les divisions sont synchrones et rapides (sans phases G1 ni G2) et l’embryon vit sur les ARNm maternels. À la transition blastuléenne, la transcription reprend (génome zygotique activé) : les divisions ralentissent et deviennent asynchrones, avec allongement de G2 et apparition de G1.
🚀 Pour aller plus loin
L’embryon est devenu une blastula. C’est précisément à ce stade que naît le mésoderme :
- Leçon 2.2 — L’induction du mésoderme (expériences de Nieuwkoop)
- Leçon 2.3 — La régionalisation de l’induction (Dale et Slack)
- Leçon 1.1 — De l’organisation étagée à concentrique et les cellules en bouteille
(Remplace les ancres « # » par les URL réelles de tes leçons Tutor LMS.)
Contenu pédagogique original — Réussir SVT. L’équipe Réussir SVT.