
Chapitre 10 — Représentation cognitive de l’espace · Topic 3 · Leçon 3.2
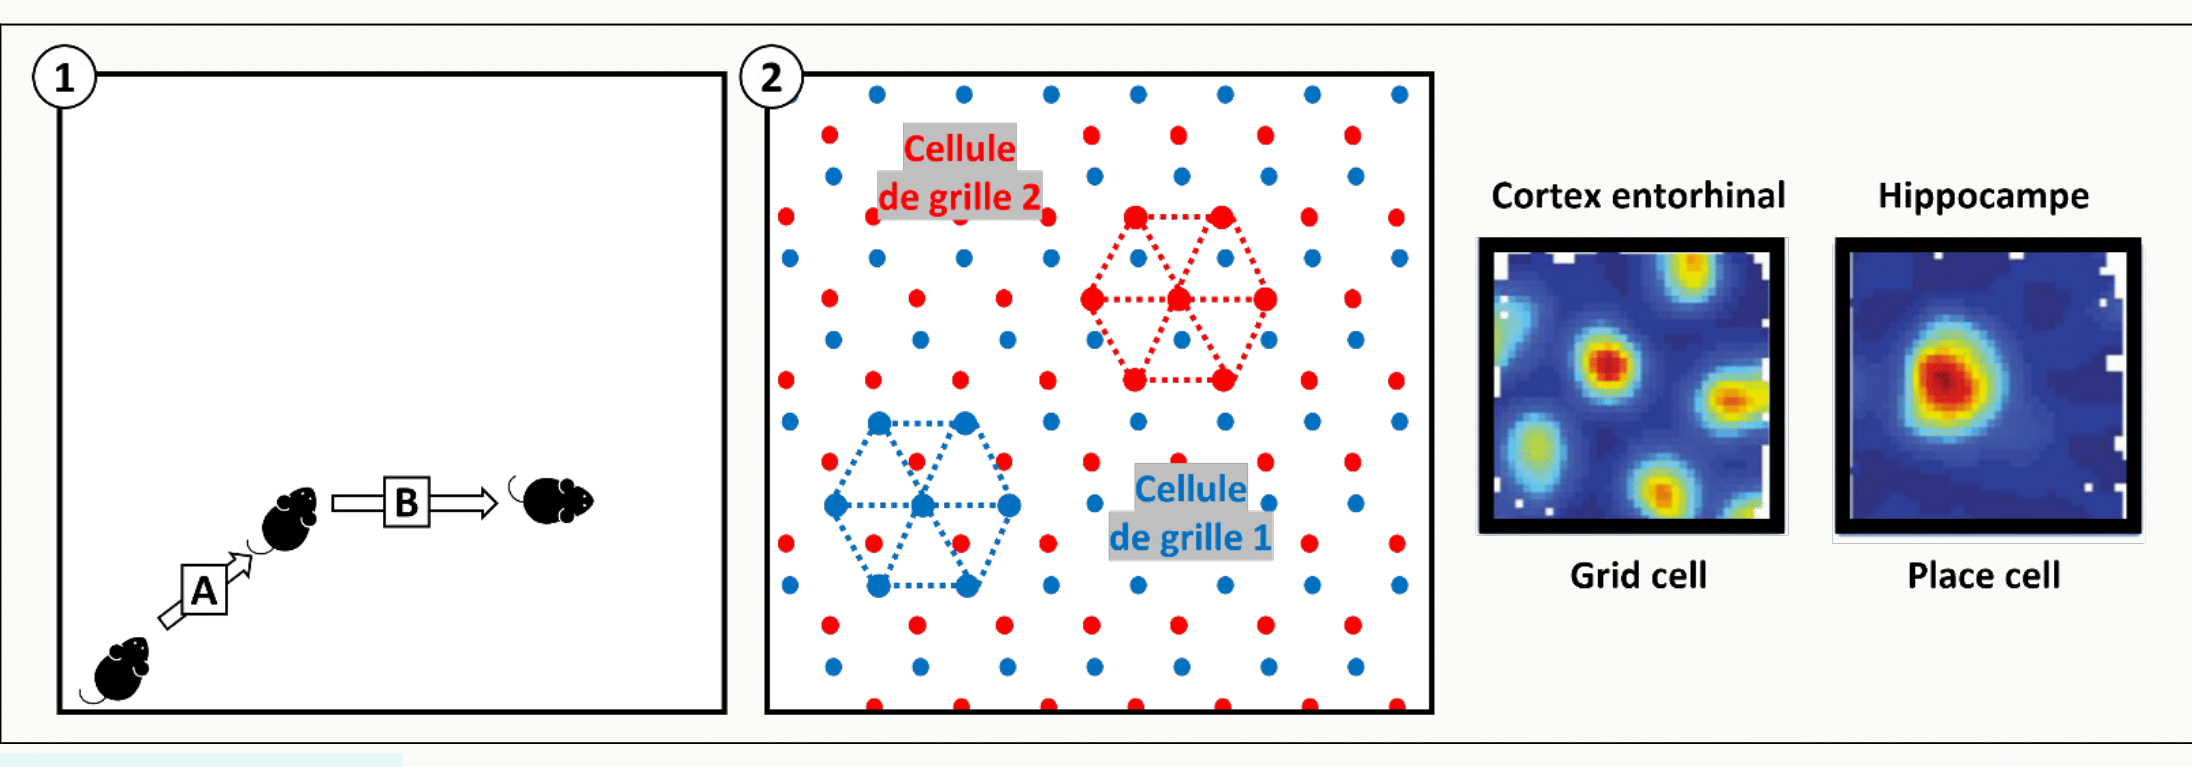
En 2005, May-Britt et Edvard Moser (Trondheim, Norvège) découvrent, dans le cortex entorhinal médian (MEC) du rat, des neurones extraordinaires : les cellules de grille (grid cells). Contrairement aux cellules de lieu (un seul champ), elles déchargent en plusieurs positions régulièrement espacées, formant un maillage hexagonal parfait. C’est la découverte du GPS interne — prix Nobel 2014 partagé avec O’Keefe.
🎯 Objectifs pédagogiques
- Décrire la découverte des cellules de grille (Moser, 2005) ;
- Comprendre le pavage hexagonal ;
- Décrire l’organisation modulaire du cortex entorhinal ;
- Situer la relation MEC → hippocampe ;
- Introduire la topologie torique (Gardner 2022).
🧭 Plan de la leçon
- Découverte (Moser, 2005)
- Le pavage hexagonal
- Organisation modulaire du MEC
- Autres cellules du MEC : direction, bordure, vitesse
- Topologie torique et intégration MEC → hippocampe
1. Découverte (Moser, 2005)
En 2005 (Nature), les Moser enregistrent des neurones du cortex entorhinal médian (MEC) — la région qui projette vers l’hippocampe — chez des rats explorant une arène. Ils s’attendaient à des cellules à champ multiple. Ils découvrent, stupéfaits, des cellules qui déchargent à des positions formant un pavage hexagonal parfait :
- Champs multiples, régulièrement espacés ;
- Disposition en triangle équilatéral (60°) → pavage hexagonal ;
- Pavage indépendant de la forme de l’arène.
C’est comme si le cerveau imprimait une règle métrique sur l’environnement, indépendamment de sa géométrie. Nobel 2014.
2. Le pavage hexagonal
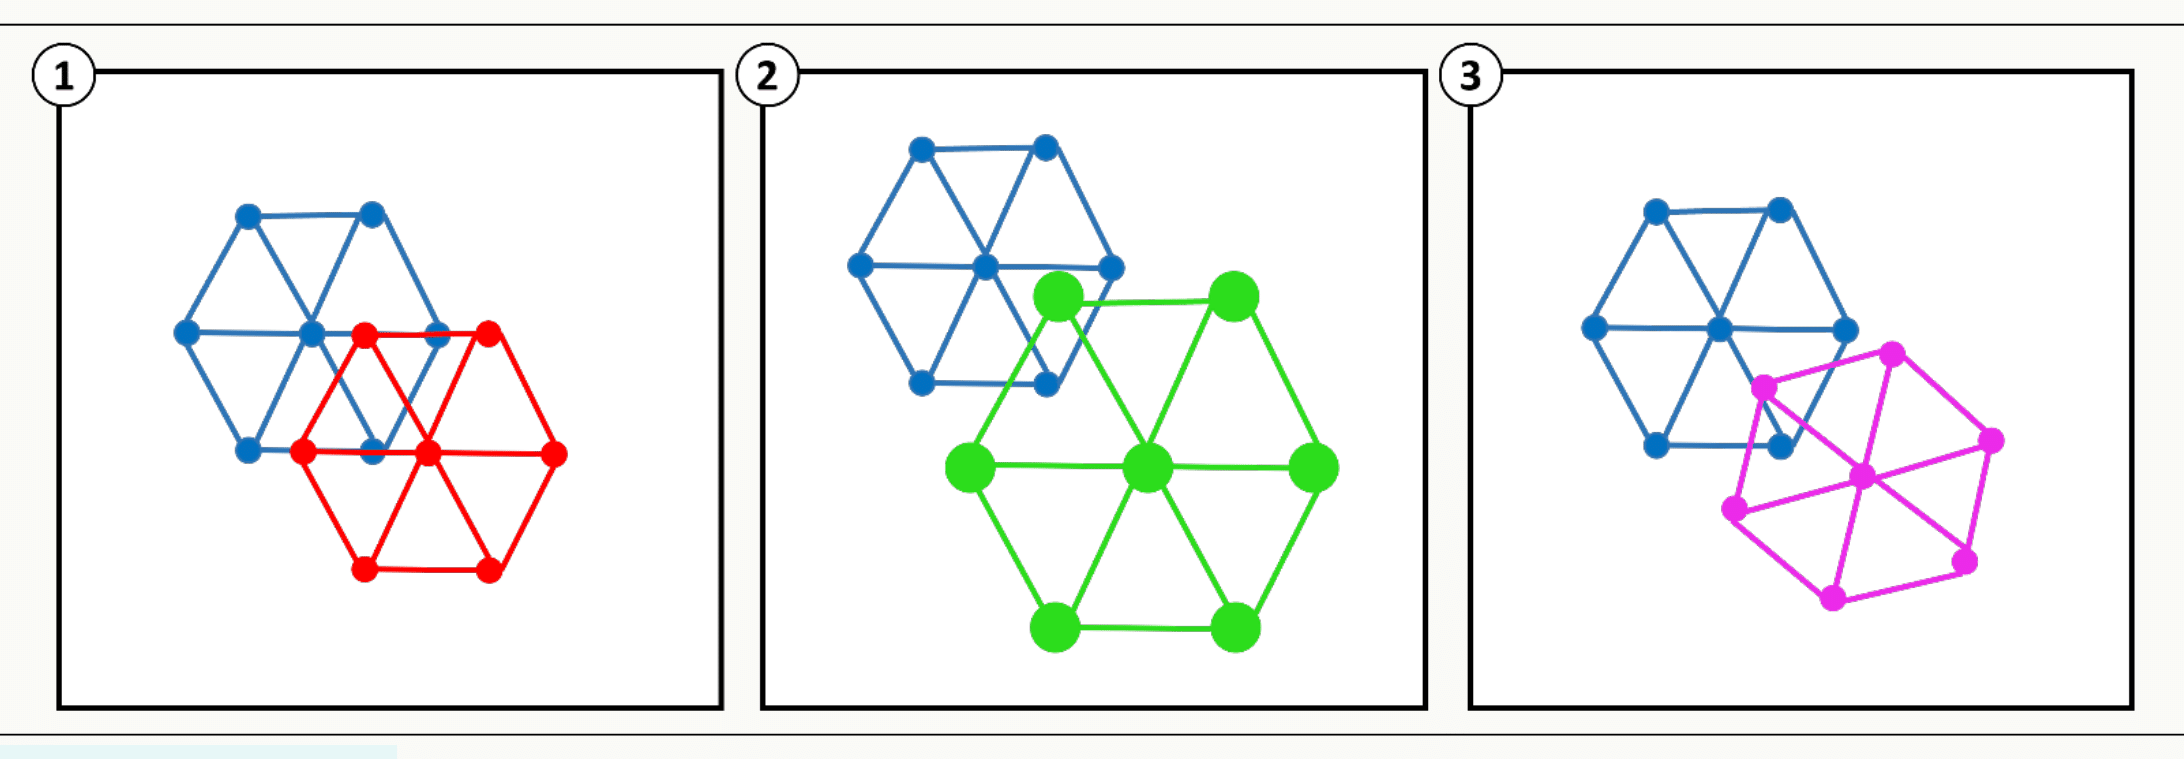
- Espacement (distance entre deux nœuds) ;
- Orientation (angle du réseau par rapport à un axe de référence) ;
- Phase (décalage 2D du réseau).
Deux cellules de grille voisines dans le MEC partagent espacement et orientation mais diffèrent par la phase (leurs pavages sont décalés). L’ensemble des cellules avec le même espacement/orientation forme un module.
Pourquoi hexagonal ? Parce que c’est le pavage optimal du plan (le plus efficace pour couvrir un espace 2D avec le moins de « trous »). Les cristaux, les alvéoles d’abeilles, les carreaux de salle de bains… la nature aime les hexagones.
3. Organisation modulaire du MEC
Le MEC est organisé en modules le long de son axe dorso-ventral :
- Module dorsal : petit espacement (~30-40 cm) — code l’espace à petite échelle ;
- Modules intermédiaires : espacements croissants ;
- Module ventral : grand espacement (jusqu’à plusieurs mètres) — code l’espace à grande échelle.
Le rapport géométrique entre modules successifs est ~1,4 (√2) — cette progression géométrique permet de couvrir une gamme d’échelles avec un minimum de modules.
Analogie : comme la représentation numérique multi-échelle (unités, dizaines, centaines) : chaque module est comme un « chiffre » d’une position codée à haute résolution.
4. Autres cellules du MEC : direction, bordure, vitesse
Le MEC contient d’autres types de neurones spatiaux :
| Type | Répond à |
|---|---|
| Cellules de grille | Position sur pavage hexagonal |
| Cellules de direction de la tête (HD) | Direction dans laquelle regarde l’animal (~40°) |
| Cellules de bordure (border cells) | Proximité d’un mur ou d’une frontière |
| Cellules de vitesse | Vitesse instantanée de déplacement |
| Cellules d’objet | Position d’objets discrets |
Ensemble, ces cellules constituent le système de positionnement global (« GPS interne ») : position, direction, distance aux bordures, vitesse — tout ce dont a besoin un système de navigation.
5. Topologie torique et intégration MEC → hippocampe
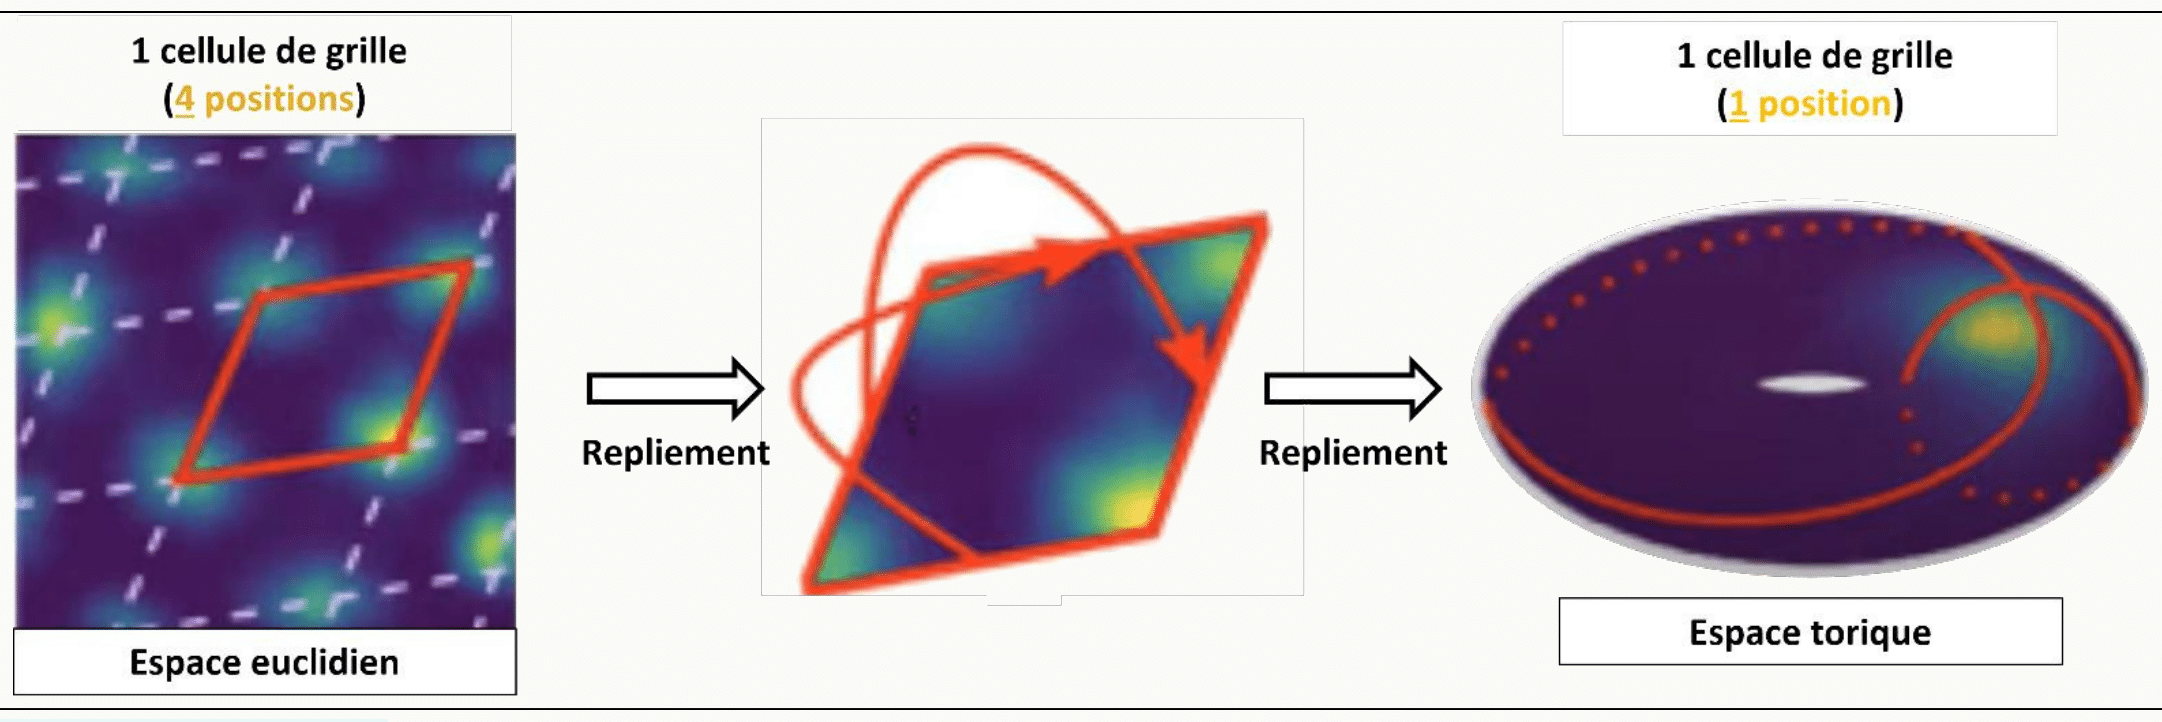
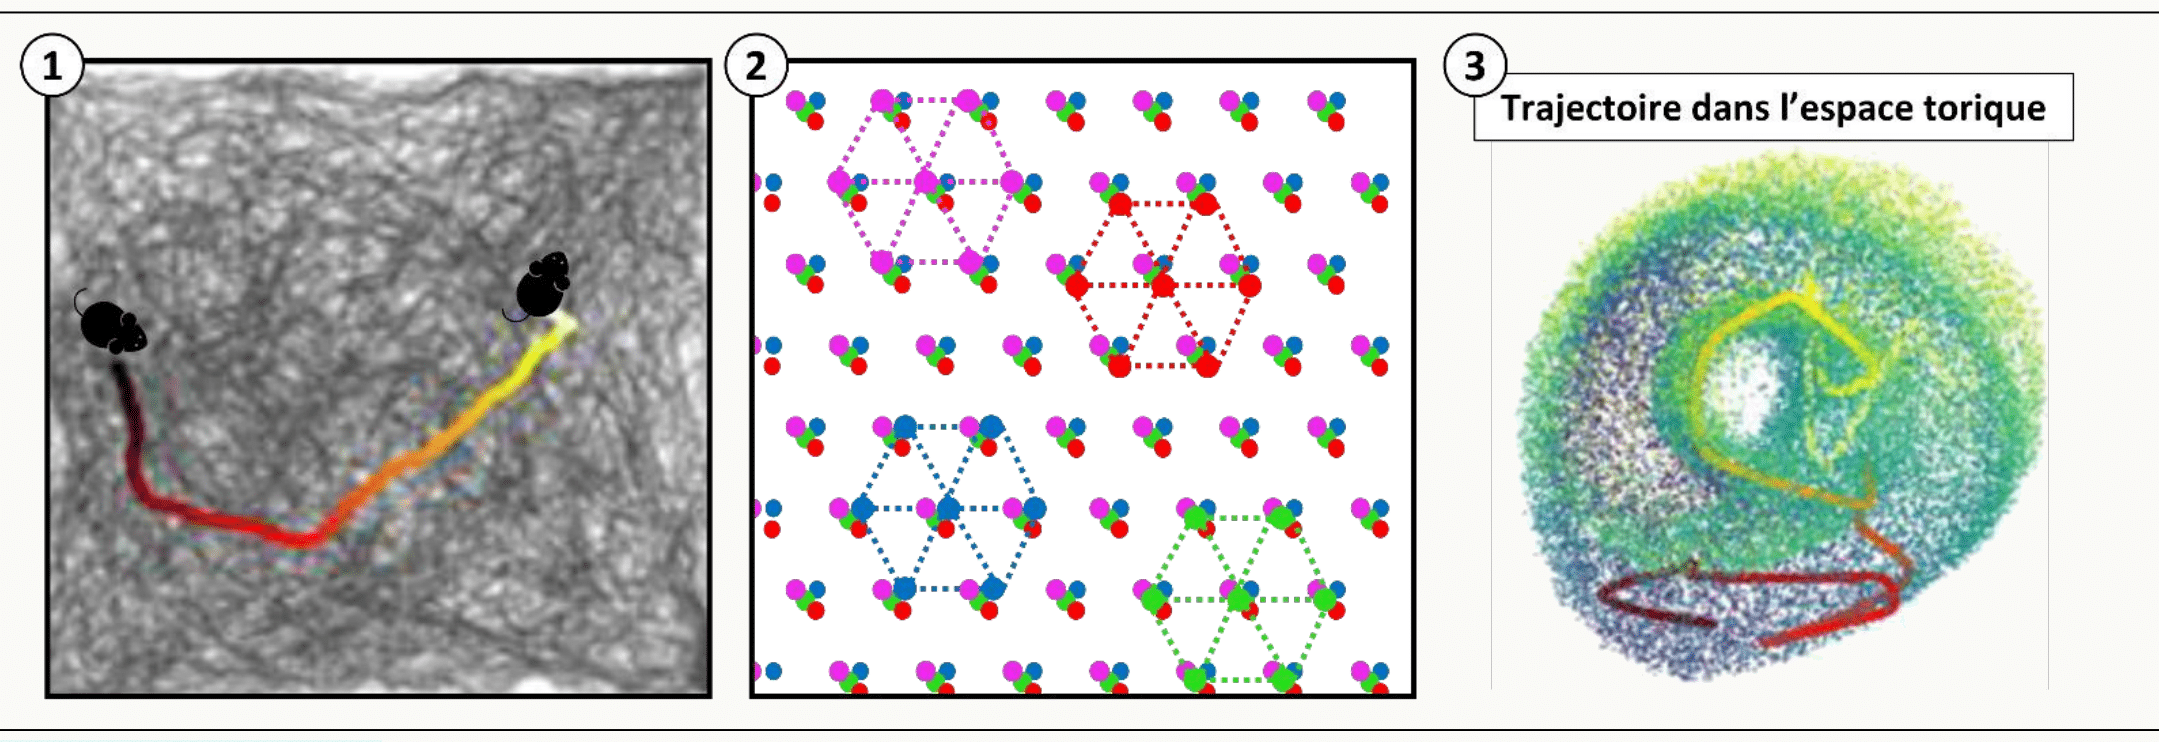
En 2022, Richard Gardner et al. (Nature) démontrent, grâce aux enregistrements Neuropixels de centaines de cellules de grille simultanées, que l’activité conjointe d’un module vit sur une surface torique :
- Le pavage hexagonal 2D s’enroule sur lui-même ;
- Chaque position dans le monde réel correspond à un point unique sur le tore ;
- Cette topologie est stable entre environnements, entre veille et sommeil, entre individus.
C’est une preuve remarquable que le MEC encode l’espace de façon topologique, indépendamment du contexte.
Les cellules de grille projettent vers le gyrus denté et CA3 de l’hippocampe. On pense que les cellules de lieu résultent d’une combinaison de plusieurs cellules de grille avec des phases décalées :
- Une seule cellule de grille = plusieurs positions (pas de champ unique) ;
- Combinaison de plusieurs grid cells + border cells + input contextuel = champ unique et localisé (place cell).
Cette voie MEC → hippocampe est celle qui se dégrade en premier dans la maladie d’Alzheimer (cf. Leçon 3.3).
🧠 À retenir absolument
- Cellules de grille : découvertes par Moser et Moser (2005), Nobel 2014.
- Localisation : cortex entorhinal médian (MEC).
- Champs multiples formant un pavage hexagonal parfait (indépendant de la forme de l’arène).
- 3 paramètres : espacement, orientation, phase.
- Modules : organisation dorso-ventrale, espacements croissants (rapport ~√2).
- Autres cellules du MEC : direction de la tête, bordure, vitesse, objet.
- Topologie torique (Gardner, Nature 2022) : activité des grid cells vit sur un tore.
- MEC → hippocampe : cellules de grille contribuent à générer les cellules de lieu.
❓ Questions fréquentes
Pourquoi le pavage est-il précisément hexagonal ?
Le pavage hexagonal est mathématiquement optimal : c’est le seul qui remplit le plan 2D avec des cellules identiques sans laisser d’espace, tout en maximisant la surface pour un périmètre donné (théorème de la ruche). Sur le plan neuronal, il correspondrait au résultat d’un mécanisme d’inhibition latérale : chaque « champ » excite le local et inhibe les environs, ce qui produit spontanément un pavage hexagonal par auto-organisation. Plusieurs modèles computationnels reproduisent ce comportement.
Pourquoi le rapport √2 entre modules ?
Parce que c’est le rapport qui optimise la représentation de position sur une gamme d’échelles avec le moins de modules possible. En termes computationnels, chaque module ajoute un « chiffre » de résolution, et un rapport de √2 (≈1,4) permet à chaque module d’ajouter environ 0,5 bit d’information (log2(√2) = 0,5). Sur ~5-10 modules, on obtient une précision spatiale remarquable pour une architecture minimale.
Que représente concrètement le tore mathématique ?
Prenez une feuille avec un pavage hexagonal. Si vous identifiez les côtés opposés deux à deux (comme dans Pac-Man qui traverse d’un bord à l’autre), vous obtenez topologiquement un tore (surface en forme de donut). L’activité d’un module de grid cells correspond à un point unique sur ce tore : quand l’animal traverse plusieurs nœuds du pavage, ses grid cells parcourent une trajectoire fermée sur le tore. C’est une géométrie contre-intuitive mais qui décrit exactement la structure d’activité observée.
Les cellules de grille existent-elles chez l’humain ?
Oui, elles ont été démontrées en 2013 par Jacobs et al. (Nature Neuroscience) chez des patients épileptiques implantés dans le cortex entorhinal, avec des propriétés hexagonales similaires à celles du rat. Il y a aussi une preuve indirecte élégante par IRMf : dans une tâche de navigation virtuelle, le signal BOLD entorhinal varie selon l’orientation de déplacement du sujet, avec une périodicité de 60° — la signature comportementale des cellules de grille (Doeller, Nature 2010).
🚀 Pour aller plus loin
Contenu pédagogique original — Réussir SVT. L’équipe Réussir SVT.